Содержание
Перейти к:
https://doi.org/10.47093/2218-7332.2026.17.2.1489
Перейти к:
Нервное сплетение, расположенное на апикальной поверхности эпендимы желудочков головного мозга, может являться важным звеном во внебарьерной передаче сигнала и регуляции состава спинномозговой жидкости, но на сегодняшний день остается малоизученным объектом центральной нервной системы.
Цель. Изучить признаки функциональной активности супраэпендимного нервного сплетения в раннем постнатальном развитии с использованием методов иммуногистохимии.
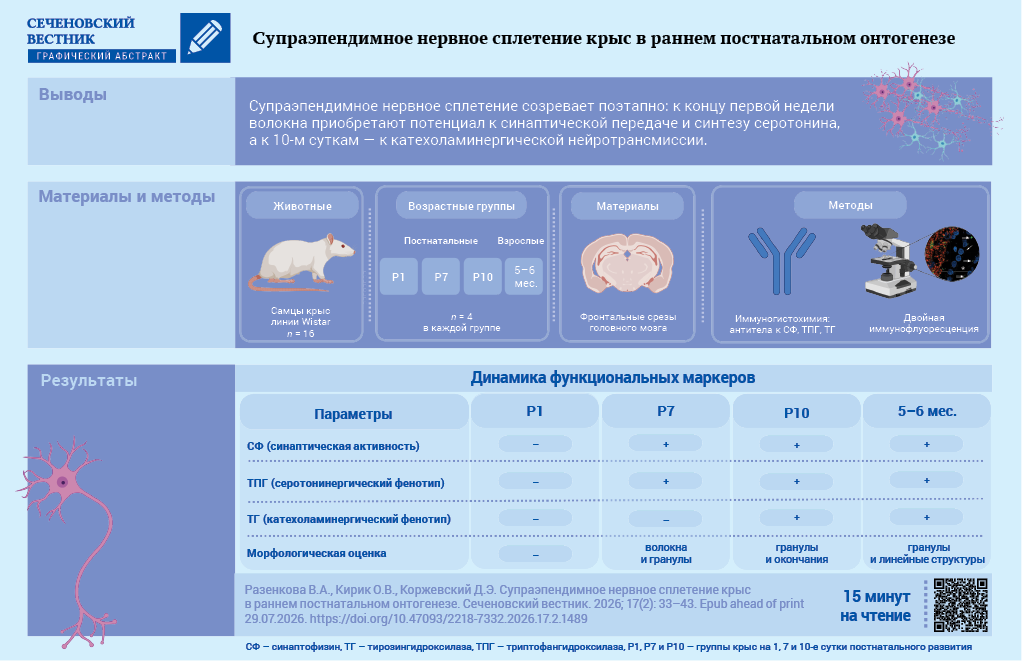
Материалы и методы. В качестве материала для иммуногистохимического исследования использовали фронтальные срезы головного мозга половозрелых крыс и крыс на 1, 7 и 10-е сутки постнатального развития (n = 16). Для выявления супраэпендимных волокон и структур, обладающих синаптической активностью, применяли антитела к тирозингидроксилазе, триптофангидроксилазе и синаптофизину.
Результаты. В супраэпендимном сплетении новорожденных крыс не было отмечено реакции ни на один из использованных маркеров. Содержащие синаптофизин гранулы или волокна с четкообразными утолщениями на поверхности эпендимных клеток впервые выявлялись к концу первой недели постнатального развития. На этом же сроке проявлялась реакция на триптофангидроксилазу. Волокна и гранулы располагались повсеместно вдоль стенок боковых и третьего желудочков, за исключением зоны инфундибулярного углубления. Только к 10-м суткам постнатального развития на апикальной поверхности эпендимы выявлялись гранулы, иммунопозитивные к тирозингидроксилазе. С помощью двойной иммунофлуоресцентной реакции показано, что области распределения триптофангидроксилазы и синаптофизина совпадают. При этом ни в одном из изученных сроков нейронов на поверхности эпендимы не было обнаружено.
Заключение. Уже к концу первой недели постнатального развития супраэпендимное нервное сплетение проявляет способность к синаптической передаче и синтезу серотонина. К 10-м суткам постнатального развития супраэпендимные нервные волокна могут участвовать в катехоламинергической нейротрансмиссии.
Биохимический состав спинномозговой жидкости (СМЖ) является важным диагностическим критерием ряда заболеваний, таких как менингит, инсульт, абсцесс головного мозга и др. Предполагается, что супраэпендимное нервное сплетение непосредственно участвует в регуляции состава и концентрации биологически активных веществ в СМЖ. Считается, что образующие его волокна являются отростками нейронов нервных центров, проникающими через эпендимный слой. Также существует мнение, что эти волокна образованы отростками супраэпендимных нейронов [1], однако их существование на данный момент не доказано. Супраэпендимное сплетение наблюдается на поверхности эпендимы боковых желудочков, отверстия Монро, третьего желудочка и сильвиева водопровода, а также дна четвертого желудочка [2]. Исключение составляют апикальные поверхности клеток, покрывающих околожелудочковые органы [3].
Несмотря на то что супраэпендимные нервные волокна были обнаружены в мозге человека еще в 1980-х годах [2][4], в настоящее время этот объект нервной системы остается малоизученным. Это обусловлено совокупностью факторов, включающих его специфическую локализацию и сложность выявления супраэпендимного нервного сплетения на гистологических препаратах. Однако морфологические исследования на приматах и других лабораторных животных показывают преемственность этой структуры в филогенетическом ряду млекопитающих [2][5][6].
Еще одной проблемой в изучении супраэпендимного нервного сплетения является то, что большинство данных, касающихся этой структуры, получены в 1970–1980-х годах, а потому нуждаются в тщательной проверке и систематизации. В настоящий момент предполагается, что супраэпендимное нервное сплетение образовано волокнами серотонинергических и катехоламинергических нейронов [2][6–8]. Сообщается также, что часть волокон и предполагаемых супраэпендимных нейронов четвертого желудочка содержат глутамат, а значит, могут быть глутаматергическими [9]. Несмотря на это, вопрос о медиаторной принадлежности супраэпендимных волокон остается не до конца решенным. Что касается их функциональной роли, основные предположения сводятся к трем вариантам: 1) они выступают в качестве хемосенсоров состава СМЖ; 2) воздействуют на клетки эпендимы, влияя на секрецию, форму эпендимоцитов или активность их ресничек; 3) выделяют в СМЖ биологически активные вещества, которые могут действовать на клетки сосудистого сплетения и нейрогипофиза, а также околожелудочковые органы, включая самое заднее поле, субкомиссуральный и субфорникальный органы [5]. В попытке оценить функциональную активность супраэпендимного нервного сплетения было показано, что оно обладает синаптической активностью [7], а поэтому может действительно секретировать нейрогормоны или же регулировать работу эпендимоцитов через асимметричные синапсы. Тем не менее ни одна из приведенных трех гипотез до сих пор не была должным образом проверена экспериментально.
И если исследования свойств и функций супраэпендимного нервного сплетения у взрослых животных достаточно многочисленны, хотя и фрагментарны, то вопросы его развития остаются неосвещенными. Общие знания о межклеточных сигнальных сетях развивающейся центральной нервной системы указывают, что супраэпендимные волокна могут участвовать в передаче сигналов уже в позднем эмбриональном или в раннем постнатальном развитии [10], однако точного ответа на этот вопрос нет. Неизвестен и период, в течение которого супраэпендимные волокна оказываются способны к синтезу нейромедиаторов.
Цель исследования – изучить признаки функциональной активности супраэпендимного нервного сплетения в раннем постнатальном развитии с использованием методов иммуногистохимии.
В качестве материала для исследования использовали фронтальные срезы головного мозга самцов крыс линии Wistar четырех возрастных групп: на 1, 7 и 10-е сутки постнатального развития (группы P1, P7 и P10 соответственно) и половозрелых животных в возрасте 5–6 месяцев (n = 16). Количество животных рассчитано методом ресурсного уравнения (resource equation method) и составило 4 крысы в каждой группе. Животные были получены из питомника «Рапполово» (Ленинградская область), содержались в виварии при комнатной температуре
в стандартных условиях со свободным доступом к пище и воде и не подвергались экспериментальным воздействиям.
Для получения потомства и формирования групп животных на разных этапах постнатального развития половозрелых самцов крыс линии Wistar подсаживали к самкам в соотношении 1:3. Наступление беременности фиксировали по наличию сперматозоидов во влагалищных мазках. После оплодотворения самок содержали по одной особи в клетке. После рождения крысята находились в клетках вместе с матерями. Забор головного мозга проводили на 1, 7 и 10-е сутки постнатального развития.
Животных для каждой стадии постнатального развития отбирали методом простой случайной выборки. Из исследования исключали животных с явными анатомическими и/или поведенческими особенностями, а также с признаками дистресса. Перед забором биологического материала животных подвергали эвтаназии путем ингаляционной передозировки парами этилового эфира. Образцы головного мозга фиксировали методом погружения в раствор цинк-этанол-формальдегида и заливали в парафин по стандартной методике. Из парафиновых блоков на ротационном микротоме Leica RM 2125RT изготавливали срезы толщиной 5 мкм и монтировали их на стекла с адгезивным покрытием HistoBond®+ (Paul Marienfeld, Лауда-Кёнигсхофен, Германия). Специалист, осуществлявший забор, проводку и подготовку биологического материала, не имел информации о дизайне исследования.
Все серии полученных гистологических препаратов обрабатывали одновременно с использованием стандартизированных протоколов иммуногистохимического окрашивания. Для иммуногистохимического выявления структур, обладающих потенциальной синаптической активностью, применяли кроличьи моноклональные антитела (клон SJ26-85) к синаптофизину (СФ; ET1606-56, Huabio, Ханчжоу, Китай) в разведении 1:400.
Для выявления супраэпендимных серотонинергических и катехоламинергических волокон использовали овечьи поликлональные антитела к триптофангидроксилазе (ТПГ; 816401, BioLegend, Сан-Диего, США) в разведении 1:1000 и кроличьи поликлональные антитела к тирозингидроксилазе (ТГ; ab112, Abcam, Кембридж, Великобритания) в разведении 1:1000 соответственно.
Для постановки отрицательного контроля один из срезов каждой обрабатываемой серии инкубировали без первичных антител: вместо их раствора наносили раствор для разведения антител Antibody Diluent (Spring Bioscience, Плезантон, США).
В качестве вторичных реагентов использовали систему детекции IMMUNO View II (1-1011-2, ImmunoRus, Москва, Россия) и авидин-биотиновый набор VECTASTAIN Universal Quick HRP kit (PK-8800, Vector Laboratories, Берлингейм, США). Продукт иммуногистохимической реакции визуализировали с использованием хромогена 3,3'-диаминобензидина, входящего в состав набора IMMUNO View II. Часть срезов дополнительно подкрашивали квасцовым гематоксилином. Полученные препараты анализировали с помощью микроскопа Leica DM750 (Вецлар, Германия) и фотографировали цифровой камерой Leica ICC50 (Вецлар, Германия).
Для проведения двойной иммунофлуоресцентной реакции антитела к СФ в разведении 1:100 и ТПГ в разведении 1:200 инкубировали в соотношении 1:1. В качестве вторичных реагентов применяли смесь антител против иммуноглобулинов козы и овцы, меченных биотином (CTS008, R&D Systems, Миннеаполис, США), и антител против иммуноглобулинов кролика, меченных флуорохромом Rhodamine Red X (711-295-152, Jackson ImmunoResearch, Филадельфия, США). После инкубации в смеси вторичных антител срезы обрабатывали раствором конъюгата стрептавидина с флуорохромом Cy2 (016-220-084, Jackson ImmunoResearch, Филадельфия, США). Для подкраски ядер клеток применяли ядерный флуоресцентный краситель Hoechst S769121 (3K010, Lumiprobe, Москва, Россия).
Полученные препараты анализировали с использованием конфокального лазерного сканирующего микроскопа LSM800, оснащенного системой Airyscan (Zeiss, Оберкохен, Германия). Для возбуждения флуоресценции Hoechst S769121 применяли лазер с длиной волны 348 нм, для Cy2 – 488 нм, для Rhodamine Red X – 561 нм. Анализ полученных изображений проводили при помощи компьютерной программы ZEN3 (Zeiss, Оберкохен, Германия). Специалист, выполнявший анализ полученных препаратов, не имел информации о тестируемых объектах.
На срезах головного мозга продукт иммуногистохимической реакции на СФ выявлялся повсеместно в гранулах округлой или овальной формы. У новорожденных крыс продукт реакции мог накапливаться в отростках, формируя на срезе отчетливую картину пучков нервных волокон. Однако на этом сроке реакции на СФ на апикальной стороне эпендимоцитов отмечено не было. Впервые СФ-позитивные структуры на поверхности эпендимных клеток выявлялись у крыс группы P7 в виде дискретно расположенных округлых гранул или волокон с четкообразными утолщениями (рис. 1). Волокна и гранулы располагались вдоль стенок боковых и третьего желудочков, за исключением зоны инфундибулярного углубления. У крыс группы P10 сохранялась сходная локализация СФ-позитивных структур, однако иммуногистохимическая реакция на СФ уже не выявляла волокон и проявлялась только в виде обособленных гранул как на поверхности эпендимы, так и в нервной ткани. СФ на поверхности эпендимы у половозрелых животных распределен сходно с крысами группы P10.

РИС. 1. Распределение синаптофизина, триптофангидроксилазы и тирозингидроксилазы в области отверстия Монро на разных сроках постнатального развития.
Примечания: иммуногистохимическая реакция с подкраской ядер гематоксилином. Стрелками обозначены супраэпендимные структуры; звездочкой – полость желудочка. Масштаб – 50 мкм.
P1, P7 и P10 – группы крыс на 1, 7 и 10-е сутки постнатального развития соответственно.
Иммуногистохимическая реакция на ТПГ позволила выявить серотонинпродуцирующие нейроны, их отростки и терминали на препаратах головного мозга крыс всех изученных возрастных групп. У крыс группы P1 присутствие продукта реакции на ТПГ на поверхности эпендимы не фиксировалось. Как и в случае с СФ, округлые или овальные гранулы, содержащие ТПГ, появлялись на поверхности эпендимы у 7-дневных животных. На препаратах крыс группы P7 также выявлялись ТПГ-иммунопозитивные волокна, расположенные вдоль апикальной поверхности эпендимоцитов. У крыс группы P10, напротив, протяженные структуры фиксировали редко, а ТПГ-иммунопозитивные гранулы часто оказывались разного размера, от крупных, порядка 6–8 мкм в диаметре, до достаточно мелких: 0,7–0,9 мкм (рис. 1). У половозрелых животных продукт иммуногистохимической реакции на ТПГ накапливался в округлых обособленных гранулах, расположенных дискретно в виде цепочек на поверхности эпендимы.
При сопоставлении результатов иммуногистохимической реакции на СФ и ТПГ, выполненных на серийных срезах одного и того же образца, было отмечено, что области распределения этих маркерных белков в супраэпендимном нервном сплетении совпадают. Как и СФ, ТПГ выявлялся вдоль стенок боковых желудочков и в передних отделах, но не в области дна третьего желудочка.
Иммуногистохимическая реакция на ТГ позволяет выявлять катехоламинпродуцирующие нейроны и их отростки на всей протяженности волокон. Интересным наблюдением оказалось то, что продукт иммуногистохимической реакции на ТГ в супраэпендимных элементах отсутствует не только у крыс группы P1, но и у крыс группы P7 (рис. 1). ТГ-иммунопозитивные гранулы на апикальной поверхности эпендимы впервые выявлялись у крыс группы P10. У половозрелых животных ТГ-иммунопозитивные структуры представляли собой обособленные гранулы и непротяженные линейные структуры с четкообразными утолщениями. Области распределения ТГ-иммунопозитивных супраэпендимных структур соответствовали областям локализации супраэпендимных волокон и синаптических терминалей, выявленных при исследовании СФ и ТПГ.
При постановке двойной иммунофлуоресцентной реакции на срезах головного мозга крыс групп P7, P10, а также половозрелых животных было показано, что большинство волокон супраэпендимного нервного сплетения было иммунопозитивно к обоим маркерам (рис. 2). Выявлялись также гранулы, содержащие СФ, но не ТПГ. При этом структуры, иммунопозитивные к ТПГ и иммунонегативные к СФ, ни в одном из изученных образцов не отмечены.

РИС. 2. Синаптофизин и триптофангидроксилаза в волокнах супраэпендимного нервного сплетения.
А. Область сильвиева водопровода на 7-е сутки постнатального развития; масштаб – 20 мкм.
В. Стенка бокового желудочка на 7-е сутки постнатального развития, визуализация с использованием технологии Airyscan; масштаб – 5 мкм.
С. Передний отдел третьего желудочка взрослого животного; трехмерная реконструкция серии оптических срезов, толщина Z-серии 4,5 мкм, размер ячейки сетки 20×20 мкм; масштаб – 20 мкм.
Примечание: двойная иммунофлуоресцентная реакция с подкраской ядер Hoechst S769121. Красный канал – синаптофизин; зеленый канал – триптофангидроксилаза; стрелками обозначены сайты потенциальной синаптической активности, содержащие синаптофизин, двойными стрелками – структуры, одновременно содержащие синаптофизин и триптофангидроксилазу; звездочкой – полость желудочка.
Основными задачами настоящего исследования были проследить проявление признаков функциональной активности супраэпендимного нервного сплетения, а также приблизительно оценить срок, на котором начинается выработка нейромедиаторов.
Для выполнения первой задачи было проведено иммуногистохимическое исследование с использованием антител к СФ – одного из белков комплекса SNARE (soluble N-ethylmaleimide-sensitive factor attachment protein receptor, рецептор растворимого белка прикрепления к N-этилмалеимид-чувствительному фактору). СФ участвует в регуляции экзоцитоза нейромедиаторов из синаптических везикул, поэтому его выявление в нервных окончаниях традиционно рассматривается как признак их синаптической активности [11]. В ходе эмбриогенеза СФ начинает выявляться на 11-й неделе пренатального развития у человека, причем его появление в тех или иных областях мозга совпадает с началом процесса синаптогенеза [12]. В головном мозге лабораторных грызунов СФ появляется в перикарионах нейронов уже к концу второй недели эмбрионального развития. Однако в нервных волокнах и синаптических структурах СФ начинает выявляться лишь на 17-е сутки эмбрионального развития, а в отдельных областях головного мозга – только после рождения, что также соответствует началу активного синаптогенеза [13][14]. Наши данные показывают, что, несмотря на повсеместное распределение СФ в нервной ткани головного мозга (рис. 1), в аксонах супраэпендимного нервного сплетения на 1-е сутки постнатального развития положительная иммуногистохимическая реакция не наблюдается. На 7-е сутки постнатального развития четкая реакция на СФ выявляется не только в пресинаптических окончаниях, но и в самих волокнах сплетения, что может отражать процесс их роста вдоль стенок желудочков головного мозга. Напротив, на 10-е сутки постнатального развития СФ выявляется преимущественно в нервных окончаниях и отсутствует в волокнах.
Такое распределение СФ может быть следствием особенностей синаптогенеза в супраэпендимном сплетении. Как известно, нервные связи, сформированные в ходе раннего развития, начинают организовывать сложные сети к концу первой недели постнатального онтогенеза, а их формирование напрямую связано с критическими периодами развития организма. Так, скоординированная активность нейронов впервые наблюдается в подкорковых структурах мозга, что связано с необходимостью координации движений [15]. А на 9-е сутки постнатального развития, уже после развития сенсорных и моторных функций, происходит резкое усиление синаптогенеза в коре [16], которое сопровождается возникновением социального поведения. Таким образом, рост конусов аксонов на 7-е сутки постнатального развития (как можно предположить из результатов иммуногистохимической реакции) и формирование функциональных нервных окончаний на 10-е сутки могут свидетельствовать о том, что роль супраэпендимного сплетения может оказаться некритична, как минимум, в первую неделю постнатального развития.
Для решения второй задачи использовали сопоставление результатов иммуногистохимической реакции на СФ с последовательными срезами одного и того же случая, с иммуногистохимической реакцией на ТПГ и ТГ – то есть ферментов, лимитирующих синтез серотонина и катехоламинов соответственно. Интерес именно к этим группам нейромедиаторов обусловлен накопленными ранее данными о возможных источниках волокон супраэпендимного нервного сплетения [6][8], рецепторах, присутствующих на клетках выстилки желудочков [17][18], а также о биологически активных молекулах, выделяемых в СМЖ путем нейросекреции [19].
И действительно, анализ препаратов показал, что уже на 7-е сутки постнатального развития волокна супраэпендимного сплетения содержат ТПГ, а на 10-е сутки – оба фермента, то есть потенциально способны к синтезу как серотонина, так и катехоламинов. Серотонинергические волокна, как считается, происходят от нейронов, сконцентрированных в ядрах шва. С помощью антероградного (направленного от тел нейронов к синаптическим терминалям) и ретроградного (наоборот, от нейритов к телам нейронов) мечения было установлено, что волокна супраэпендимного нервного сплетения в боковом желудочке принадлежат клеткам дорсального и медиального ядер шва [20]. Несмотря на то что некоторые ранние исследования предполагали присутствие в самих желудочках тел нейронов, способных к синтезу серотонина [21][22], на сегодняшний день нет оснований полагать, что на поверхности эпендимы могут располагаться серотонинергические нейроны. В ходе анализа полученных в настоящем исследовании препаратов также не было выявлено структур, морфологически соответствующих телам нейронов. Однако и об отсутствии нейронов в желудочках головного мозга нельзя говорить с полной уверенностью. Если источники серотонинергических аксонов уже определены, то расположение катехоламинергических нервных клеток, волокна которых лежат на апикальной поверхности эпендимы, до сих пор неизвестно.
Существует вероятность, что источником волокон могут оказаться одни и те же нейроны. Данные масс-спектрометрического анализа, проведенного в разных отделах мозга, позволили выявить несколько ядер, содержащих клетки двойной эргичности. В частности, в клетках дорсального ядра шва, одного из источников супраэпендимных волокон, ТПГ колокализуется с норадреналином [23]. Еще одним косвенным подтверждением данного предположения является более раннее исследование, выполненное с использованием методов трансмиссионной электронной микроскопии [20]. Авторами было показано, что в одном синаптическом окончании супраэпендимного аксона одновременно могут находиться не только электронно-плотные (то есть содержащие серотонин), но и прозрачные везикулы. Это позволяет предположить, что ТПГ-содержащие аксоны могут высвобождать котрансмиттеры. Таким образом, согласно результатам настоящего исследования, такими дополнительными нейротрансмиттерами действительно могут оказаться катехоламины. При этом, судя по всему, синтез катехоламинов в аксонах супраэпендимного нервного сплетения начинается позже, чем синтез серотонина.
Появление ТГ в волокнах на более позднем сроке, чем ТПГ, коррелирует с общими представлениями о развитии катехоламинергической нервной системы, критическим периодом которого считается именно первый месяц постнатального онтогенеза [24][25]. Кроме того, известно, что серотонин является биологически активной молекулой, влияющей на миграцию и позиционирование нейронов в нервной ткани головного мозга [26]. Также с помощью серотонина в раннем постнатальном развитии происходят регуляция созревания и стабилизация дендритных шипиков глутаматергических нейронов головного мозга [27], что указывает на его участие в формировании нервных сетей. Это достаточно консервативные черты в филогенетическом ряду позвоночных, с помощью которых обеспечиваются постнатальный синаптогенез, нейрогенез и морфогенез головного мозга [26–28]. Может оказаться, что уже сформированные серотонинергические волокна супраэпендимного нервного сплетения могут образовывать пространственные и функциональные взаимоотношения с прорастающими катехоламинергическими аксонами.
Поэтому нельзя исключать и того, что катехоламинергические и серотонинергические волокна супраэпендимного нервного сплетения могут являться структурами, существующими параллельно друг с другом. В этом контексте интересен результат двойной иммунофлуоресцентной реакции на СФ и ТПГ, с помощью которой показано, что эти два белка не всегда колокализованы в одном синаптическом окончании. Это означает, что в таких синаптических сайтах высвобождаются другие медиаторы. Ими могут оказаться как катехоламины, в частности норадреналин [23], так и другие молекулы, например уже упомянутый ранее глутамат [9].
Стоит также упомянуть отмеченный ранее факт, что пространственное распределение супраэпендимных катехоламинергических волокон часто совпадает с наличием в подлежащей нервной ткани катехоламинергического субэпендимного сплетения [7]. Кроме того, известно, что в определенных областях мозга, таких как околожелудочковая зона дорсального стриатума [8], субфорникальный орган [29] и ядра медиобазального гипоталамуса [18], ТГ-содержащие волокна могут проходить сквозь слой эпендимных клеток и вступать в контакт с СМЖ. Таким образом, источником ТГ-позитивных волокон может оказаться одна из таких структур.
Данная работа проведена на фронтальных срезах головного мозга, что ограничивает информативность данных, получаемых с помощью морфологического исследования. Поэтому перспективным направлением для дальнейших исследований представляется изготовление и изучение препаратов стенок желудочков.
Результаты настоящего исследования следует считать пилотными из-за ограниченного количества животных, исследуемых сроков постнатального развития и данных, полученных только на самцах крыс. Так, отмеченные сроки появления маркеров функциональной активности остаются приблизительными ввиду отсутствия в работе анализа других сроков развития помимо первых, седьмых и десятых постнатальных суток. В связи с ограниченной выборкой, а также особенностями локализации и выявления на гистологических препаратах объекта исследования количественная оценка иммунопозитивных структур не проводилась, вследствие чего исследование имеет преимущественно описательный характер. Поэтому разработка специализированных методик для морфометрического описания супраэпендимного нервного сплетения является одной из актуальных задач будущих исследований.
В результате настоящего исследования стало возможным оценить динамику синаптических изменений супраэпендимного нервного сплетения в раннем постнатальном онтогенезе. Согласно полученным результатам триптофангидроксилаза и синаптофизин содержатся в одном волокне или нервном окончании уже на 7-е сутки постнатального развития, а значит супраэпендимные волокна к концу первой недели постнатального развития предположительно способны к синтезу и высвобождению моноаминов. Появление тирозингидроксилазы в исследуемых структурах регистрируется позже, на 10-е постнатальные сутки. Прояснение вопросов о совместном или раздельном синтезе серотонина и катехоламинов одними и теми же волокнами супраэпендимного нервного сплетения, а также о присутствии на поверхности эпендимы нейронов требует дальнейших исследований.
В.А. Разенкова: проведение эксперимента, сбор данных, анализ данных, подготовка текста рукописи. О.В. Кирик: проведение эксперимента, анализ данных, подготовка текста рукописи. Д.Э. Коржевский: разработка концепции и дизайна исследования, критический пересмотр рукописи. Все авторы утвердили окончательную версию статьи.
Соответствие принципам этики. Исследование проведено с соблюдением положений Европейской конвенции о защите позвоночных животных, которые используются для экспериментальных и других научных целей. Исследование проведено в соответствии с разрешением Локального этического комитета ФГБНУ «Институт экспериментальной медицины» (протокол № 1/25 от 23.01.2025).
Доступ к данным исследования. Данные, подтверждающие выводы этого исследования, можно получить у авторов по обоснованному запросу.
Конфликт интересов. Авторы заявляют об отсутствии конфликта интересов.
Финансирование. Исследование выполнено за счет средств государственного задания ФГБНУ «Институт экспериментальной медицины» № FGWG-2025-0003.
Использование искусственного интеллекта. Инструменты искусственного интеллекта не использовались при подготовке данной рукописи.
Благодарности. Авторы благодарят сотрудников Центра коллективного пользования научным оборудованием «Клеточные и молекулярные технологии» ФГБНУ «Институт экспериментальной медицины» (Санкт-Петербург, Россия) за предоставление доступа к оборудованию и техническую поддержку.
1. Martínez P.M., de Weerd H. The fine structure of the ependymal surface of the recessus infundibularis in the rat. Anat Embryol (Berl). 1977 Dec; 151(3): 241–265. https://doi.org/10.1007/BF00318929. PMID: 603079
2. Richards J.G., Lorez H.P., Colombo V.E., et al. Demonstration of supra-ependymal 5-HT nerve fibres in human brain and their immunohistochemical identification in rat brain. J Physiol (Paris). 1981; 77(2–3): 219–224. PMID: 7026769
3. Rodríguez P., Bouchaud C. The supra-ependymal innervation is not responsible for the repression of tight junctions in the rat cerebral ependyma. Neurobiology (Bp). 1996; 4(3): 185–201. PMID: 9044345
4. Richards J.G., Lorez H.P., Colombo V.E., et al. Supraependymal nerve fibres in human brain: correlative transmission and scanning electron microscopical and fluorescence histochemical studies. Neuroscience. 1980; 5(8): 1489–1502. https://doi.org/10.1016/0306-4522(80)90011-1. PMID: 7402482
5. Lorez H.P., Richards J.G. Supra-ependymal serotoninergic nerves in mammalian brain: morphological, pharmacological and functional studies. Brain Res Bull. 1982 Jul-Dec; 9(1–6): 727–741. https://doi.org/10.1016/0361-9230(82)90179-4. PMID: 6184136
6. Michaloudi H.C., Papadopoulos G.C. Catecholaminergic and serotoninergic fibres innervate the ventricular system of the hedgehog CNS. J Anat. 1996 Oct; 189(Pt 2): 273–283. PMID: 8886949
7. Разенкова В.А., Кирик О.В. Синаптофизин в супраэпендимных структурах головного мозга крысы. Цитология. 2023; 65(4): 348–353. https://doi.org/10.31857/S0041377123040107. EDN: ZKYDBB
8. Troshev D., Bannikova A., Blokhin V., et al. Striatal neurons partially expressing a dopaminergic phenotype: functional significance and regulation. Int J Mol Sci. 2022 Sep; 23(19): 11054. https://doi.org/10.3390/ijms231911054. PMID: 36232359
9. Robinson S.R., Noone D.F., O’Dowd B.S. Ependymocytes and supra-ependymal axons in rat brain contain glutamate. Glia. 1996 Aug; 17(4): 345–348. https://doi.org/10.1002/(SICI)1098-1136(199608)17:4<345::AID-GLIA9>3.0.CO;2-Y. PMID: 8856331. EDN: AVNPVY
10. Hennou S., Khalilov I., Diabira D., et al. Early sequential formation of functional GABA(A) and glutamatergic synapses on CA1 interneurons of the rat foetal hippocampus. Eur J Neurosci. 2002 Jul; 16(2): 197–208. https://doi.org/10.1046/j.14609568.2002.02073.x. PMID: 12169102
11. Колос Е.А., Григорьев И.П., Коржевский Д.Э. Маркер синаптических контактов – синаптофизин. Морфология. 2015; 147(1): 78–82. EDN: TIJLST
12. Sarnat H.B., Born D.E. Synaptophysin immunocytochemistry with thermal intensification: a marker of terminal axonal maturation in the human fetal nervous system. Brain Dev. 1999 Jan; 21(1): 41–50. https://doi.org/10.1016/s0387-7604(98)00068-0. PMID: 10082252
13. Leclerc N., Beesley P.W., Brown I., et al. Synaptophysin expression during synaptogenesis in the rat cerebellar cortex. J Comp Neurol. 1989 Feb; 280(2): 197–212. https://doi.org/10.1002/cne.902800204. PMID: 2494237
14. Ovtscharoff W., Bergmann M., Marquèze-Pouey B., et al. Ontogeny of synaptophysin and synaptoporin in the central nervous system: differential expression in striatal neurons and their afferents during development. Brain Res Dev Brain Res. 1993 Apr; 72(2): 219–225. https://doi.org/10.1016/0165-3806(93)90186-e. PMID: 8485845
15. Dehorter N., Vinay L., Hammond C., Ben-Ari Y. Timing of developmental sequences in different brain structures: physiological and pathological implications. Eur J Neurosci. 2012 Jun; 35(12): 1846–1856. https://doi.org/10.1111/j.1460-9568.2012.08152.x. PMID: 22708595. EDN: PGKMRJ
16. Naskar S., Narducci R., Balzani E., et al. The development of synaptic transmission is time-locked to early social behaviors in rats. Nat Commun. 2019 Mar; 10(1): 1195. https://doi.org/10.1038/s41467-019-09156-3. PMID: 30867422. EDN: REVGHL
17. Li X., Wang S., Zhang D., et al. The periaxonal space as a conduit for cerebrospinal fluid flow to peripheral organs. Proc Natl Acad Sci USA. 2024 Nov; 121(45): e2400024121. https://doi.org/10.1073/pnas.2400024121. Epub 2024 Nov 1. PMID: 39485799. EDN: AQVPEZ
18. Meister B., Hökfelt T., Tsuruo Y., et al. DARPP-32, a dopamine- and cyclic AMP-regulated phosphoprotein in tanycytes of the mediobasal hypothalamus: distribution and relation to dopamine and luteinizing hormone-releasing hormone neurons and other glial elements. Neuroscience. 1988 Nov; 27(2): 607–622. https://doi.org/10.1016/0306-4522(88)90292-8. PMID: 2905789
19. Murtazina A.R., Bondarenko N.S., Pronina T.S., et al. A comparative analysis of CSF and the blood levels of monoamines as neurohormones in rats during ontogenesis. Acta Naturae. 2021 OctDec; 13(4): 89–97. https://doi.org/10.32607/actanaturae.11516. PMID: 35127152. EDN: VKGBIM
20. Tong C.K., Cebrián-Silla A., Paredes M.F., et al. Axons take a dive: specialized contacts of serotonergic axons with cells in the walls of the lateral ventricles in mice and humans. Neurogenesis (Austin). 2014 Jan; 1(1): e29341. https://doi.org/10.4161/neur.29341. PMID: 26413556
21. Cupédo R.N.J. The surface ultrastructure of the habenular complex of the rat. Anat Embryol (Berl). 1977 Dec; 152(1): 43–64. https://doi.org/10.1007/BF00341434. PMID: 605996
22. Cupédo R.N.J., de Weerd H. Serotonergic intraventricular axons in the habenular region. Phagocytosis after induced degeneration. Anat Embryol (Berl). 1980; 158(2): 213–226. https://doi.org/10.1007/BF00315907. PMID: 7356178
23. Sugiyama E., Guerrini M.M., Honda K., et al. Detection of a high-turnover serotonin circuit in the mouse brain using mass spectrometry imaging. iScience. 2019 Oct; 20: 359–372. https://doi.org/10.1016/j.isci.2019.09.036. Epub 2019 Sep 27. PMID: 31614319
24. Kalinina T.S., Dygalo N.N. Development of the noradrenergic system of the rat brain after prenatal exposure to corticosterone. Biology Bulletin. 2013; 40(6): 545–549. https://doi.org/10.1134/S1062359013040043. EDN: SKZMQN
25. Сухарева Е.В., Калинина Т.С., Булыгина В.В., Дыгало Н.Н. Тирозингидроксилаза мозга и ее регуляция глюкокортикоидами. Вавиловский журнал генетики и селекции. 2016; 20(2): 212–219. https://doi.org/10.18699/VJ16.156. EDN: WLVJZL
26. García-González D., Khodosevich K., Watanabe Y., et al. Serotonergic projections govern postnatal neuroblast migration. Neuron. 2017 May; 94(3): 534–549.e9. https://doi.org/10.1016/j.neuron.2017.04.013. PMID: 28472655
27. Chang V.N., Ogelman R., Vargas R.S., Oh W.C. Serotonergic modulation of excitatory synapse development and plasticity. Mol Cells. 2026 May; 49(5): 100346. https://doi.org/10.1016/j.mocell.2026.100346. Epub 2026 Mar 10. PMID: 41819288. EDN: PXVANM
28. Udoh U.G., Bruno J.R., Osborn P.O., Pratt K.G. Serotonin strengthens a developing glutamatergic synapse through a PI3Kdependent mechanism. J Neurosci. 2024 Feb; 44(6): e1260232023. https://doi.org/10.1523/JNEUROSCI.1260-23.2023. PMID: 38169457. EDN: TKWRLG
29. Razenkova V.A., Korzhevskii D.E. Catecholaminergic structures of the rat subfornical organ. Cell and Tissue Biology. 2022; 16(6): 568–575. https://doi.org/10.1134/S1990519X22060062. EDN: NLALOY
Разенкова Валерия Алексеевна, канд. биол. наук, научный сотрудник лаборатории функциональной морфологии центральной и периферической нервной системы
Академика Павлова, д. 12, г. Санкт-Петербург, 197022
Кирик Ольга Викторовна, канд. биол. наук, старший научный сотрудник лаборатории функциональной морфологии центральной и периферической нервной системы
ул. Академика Павлова, д. 12, г. Санкт-Петербург, 197022
Коржевский Дмитрий Эдуардович, д-р мед. наук, профессор РАН, заведующий лабораторией функциональной морфологии центральной и периферической нервной системы
ул. Академика Павлова, д. 12, г. Санкт-Петербург, 197022

|
1. Чек-лист ARRIVE | |
| Тема | ||
| Тип | Исследовательские инструменты | |
Скачать
(107KB)
|
Метаданные ▾ | |
Журнал «Сеченовский вестник» |
| Sechenov Medical Journal |
Рецензии на рукопись |
| Peer-review reports |
Название / Title | Супраэпендимное нервное сплетение крыс в раннем постнатальном онтогенезе / The supraependymal nerve plexus in rats during early postnatal development |
Раздел / Section
| КЛЕТОЧНАЯ БИОЛОГИЯ / CELL BIOLOGY
|
Тип / Article | Оригинальная статья / Original article |
Номер / Number | 1489
|
Страна/территория / Country/Territory of origin | Россия / Russia |
Язык / Language | Русский / Russian Английский / English
|
Источник / Manuscript source | Инициативная рукопись / Unsolicited manuscript |
Дата поступления / Received | 16.04.2026
|
Тип рецензирования / Type ofpeer-review | Двойное слепое / Double blind |
Язык рецензирования / Peer-review language | Русский / Russian
|
РЕЦЕНЗЕНТ А / REVIEWER A
Инициалы / Initials | 1489_А
|
Научная степень / Scientific degree | Доктор медицинских наук / Doctor of Sci. (Medicine)
|
Страна/территория / Country/Territory | Россия / Russia
|
Дата рецензирования / Date of peer-review | 10.06.2026 |
Число раундов рецензирования / Number of peer-review rounds | 2 |
Финальное решение / Final decision | принять к публикации / accept
|
ПЕРВЫЙ РАУНД РЕЦЕНЗИРОВАНИЯ / FIRST ROUND OF PEER-REVIEW
Супраэпендимное нервное сплетение остается одной из наименее изученных периферических структур ЦНС, особенно в аспекте его постнатального развития; большинство имеющихся данных датируется работами 1970–80-х гг. и получено преимущественно на взрослых животных. Представленная работа восполняет существенный пробел, впервые описывая динамику становления данной структуры в критический период раннего постнатального онтогенеза, что имеет прямое отношение к проблемам раннего синаптогенеза, нейрорегуляции состава ликвора и перивентрикулярного нейрогенеза.
Авторами применен современный арсенал гистохимических подходов: традиционную иммуногистохимию с хромогенной визуализацией, двойную иммунофлуоресценцию и конфокальную микроскопию. Двойное мечение подтверждает высокую специфичность локализации маркеров и исключает артефакты наложения сигналов.
Научная новизна работы заключается в первом экспериментальном доказательстве гетерохронного становления функциональной активности супраэпендимного нервного сплетения: синаптическая компетентность и способность к синтезу серотонина формируются к 7-м постнатальным суткам, тогда как катехоламинергический компонент — только к 10-м суткам.
Работа выполнена на актуальную фундаментальную тему на высоком методическом уровне, прекрасно иллюстрирована. У рецензента нет замечаний по существу исследования, однако есть отдельные вопросы и пожелания по разделам «Введение» и «Обсуждение».
Использование авторами термина «супраэпендимные нейроны» является дискуссионным и требует существенных терминологических уточнений, поскольку в научной литературе отсутствует единый консенсус по этому вопросу. Авторы демонстрируют внутреннюю противоречивость в использовании данного термина. Так, во введении указано, что «… нервные волокна образованы супраэпендимными нейронами, а также клетками нервных центров, посылающих отростки сквозь эпендимный слой»; в то же время в обсуждении авторы сами признают, что существование истинных нейронов на поверхности эпендимы не доказано, однако продолжают использовать термин «супраэпендимные нейроны» без оговорок. У читателя-морфолога, не погруженного столь глубоко в проблему, может возникнуть впечатление, что на поверхности эпендимы повсеместно располагаются полноценные нейроны, тогда как преобладающий компонент сплетения — терминали аксонов, происходящих из отдаленных ядер.
В настоящей работе, выполненной с помощью достаточно специфических современных методов, наличие супраэпендимных нейронов также не выявлено; этот момент целесообразно специально зафиксировать не только в обсуждении, но и в аннотации и заключении.
Вопросы, касающиеся функций супраэпендимного сплетения (хемосенсорика, регуляция эпендимы, нейросекреция) не входят в число задач исследования, сама работа демонстрирует структурное созревание сплетений, но не предоставляет прямых доказательств в пользу какой-либо их функциональной роли. Поэтому эту новеллу более логично развернуть не во введении, а в разделе «Обсуждение».
ЗАКЛЮЧЕНИЕ: необходима доработка
ВТОРОЙ РАУНД РЕЦЕНЗИРОВАНИЯ / SECOND ROUND OF PEER-REVIEW
В переработанный вариант статьи авторами внесены необходимые уточнения и редакционные коррективы с учетом пожеланий рецензента. Работа может быть рекомендована к публикации.
ЗАКЛЮЧЕНИЕ: принять к публикации
РЕЦЕНЗЕНТ B / REVIEWER B
Инициалы / Initials | 1489_В
|
Научная степень / Scientific degree | Кандидат медицинских наук / Candidate of Sci. (Medicine)
|
Страна/территория / Country/Territory | Россия / Russian
|
Дата рецензирования / Date of peer-review | 12.06.2026 |
Число раундов рецензирования / Number of peer-review rounds | 2 |
Финальное решение / Final decision | принять к публикации / accept
|
ПЕРВЫЙ РАУНД РЕЦЕНЗИРОВАНИЯ / FIRST ROUND OF PEER-REVIEW
Представленная статья посвящена изучению супраэпендимного нервного сплетения крыс в раннем постнатальном онтогенезе с использованием иммуногистохимических методов. Работа направлена на оценку сроков появления маркеров синаптической активности и моноаминергической нейротрансмиссии в супраэпендимных структурах желудочковой системы головного мозга.
Актуальность исследования не вызывает сомнений. Супраэпендимное нервное сплетение остается недостаточно изученной структурой ЦНС, несмотря на его потенциальную роль в регуляции состава спинномозговой жидкости, взаимодействии с эпендимой и участии в нейросекреторных процессах. Особенно значимым является изучение этой структуры в раннем постнатальном периоде, поскольку именно в это время происходят интенсивные процессы формирования нейральных сетей, синаптогенеза и становления нейромедиаторных систем.
Научная новизна работы заключается в попытке определить сроки появления синаптофизин-, триптофангидроксилаза- и тирозингидроксилаза-иммунопозитивных структур в составе супраэпендимного сплетения у крыс на 1-е, 7-е и 10-е сутки постнатального развития. Интерес представляет вывод авторов о более раннем появлении признаков серотонинергической активности по сравнению с катехоламинергической. Дополнительную ценность работе придает использование двойной иммунофлуоресцентной реакции для сопоставления распределения синаптофизина и триптофангидроксилазы.
Иллюстративный материал достаточно высокого качества, в целом и полном соответствует содержанию статьи и демонстрирует основные результаты исследования. Компоновка панелей по принципу «маркер × возраст» удачна и позволяет визуально сопоставить динамику иммуногистохимической реакции. Подпись к рисунку содержит необходимые пояснения: указаны метод окрашивания, значение «стрелок и звездочек», возрастные группы и масштабный отрезок. В подписи желательно уточнить, что масштабный отрезок 50 мкм относится ко всем панелям рисунка.
Список литературы включает как классические работы 1970-1990-х годов, так и современные публикации. Наличие значительного числа ранних источников оправдано спецификой темы, поскольку многие фундаментальные данные о супраэпендимных волокнах были получены именно в этот период. Вместе с тем доля публикаций последних лет ограничена, поэтому список литературы желательно, при возможности, дополнить современными источниками по постнатальному развитию эпендимы, желудочковой зоны, серотонинергической регуляции, нейрогенным нишам и механизмам созревания синаптических контактов.
Основное замечание касается преимущественно описательного характера исследования. В работе отсутствует количественная оценка иммунопозитивных структур, количестве исследованных срезов и полей зрения, а также не описан статистический анализ. Это ограничивает доказательность выводов и делает часть заключений скорее качественными, чем строго количественно подтвержденными.
Желательно уточнить, проводился ли анализ препаратов вслепую и каким образом исключалась неспецифическая реакция.
Ряд формулировок в обсуждении и заключении следует сделать более «осторожными». Наличие синаптофизина и ферментов синтеза моноаминов указывает на потенциально функциональную активность структур, однако само по себе не доказывает факт нейромедиаторного высвобождения или полноценной синаптической передачи. Поэтому выводы о «синаптической активности» и «моноаминергической активности» желательно формулировать как морфологические признаки потенциальной функциональной зрелости.
Также, желательно усилить обсуждение ограничений исследования. Авторы указывают пилотный характер работы, малое количество животных, ограниченное число сроков и использование только самцов, однако эти ограничения следует связать с интерпретацией результатов. Особенно важно подчеркнуть, что промежуточные сроки между P1, P7 и P10 не исследовались, поэтому точный момент появления маркеров остается приблизительным.
В тексте встречаются отдельные стилистические и терминологические неточности, которые требуют редакторской правки. Согласно общим правилам орфографии, прилагательные, образованные от имён учёных в научных терминах, пишутся со строчной буквы. Поэтому, желательно ввести терминологические названия структур (межжелудочковое отверстие - отверстие монро). Ну и позволю себе замечание напоследок - термин «иммуноокрашивание» – не совсем корректен, это не окрашивание, это биохимическая реакция, несмотря на то что термин понемногу устаивается, предложу использовать: иимунопозитивная, иимунореактивная, ТГ-положительная структура.
ЗАКЛЮЧЕНИЕ: необходима доработка.
ВТОРОЙ РАУНД РЕЦЕНЗИРОВАНИЯ / SECOND ROUND OF PEER-REVIEW
Авторы внесли изменения в соответствии с замечаниями, возникшими при первом рецензировании статьи. Статья может быть принята к публикации
ЗАКЛЮЧЕНИЕ: принять к публикации
РЕКОМЕНДАЦИИ НАУЧНЫХ РЕДАКТОРОВ ЖУРНАЛА / RECOMMENDATIONS OF THE SCIENTIFIC EDITORS OF THE JOURNAL
 Послать статью по эл. почте (Необходимо имя пользователя (логин))
Связаться с автором (Необходимо имя пользователя (логин))
119048, г. Москва, ул. Трубецкая, д. 8, стр. 2
E-mail: sechenovmedj@staff.sechenov.ru