Содержание
Перейти к:
https://doi.org/10.47093/2218-7332.2026.17.2.1517
Перейти к:
Цель. Изучить морфологические изменения в желудке и кишечнике трансгенных мышей линии со шведской мутацией в гене белка-предшественника амилоида и делецией экзона 9 в гене пресенилина 1 (APPswe/ PS1dE9, amyloid precursor protein with the Swedish mutation / presenilin 1 deleted exon 9 line), используемых в качестве модели болезни Альцгеймера.
Материалы и методы. Для оценки когнитивных нарушений у животных проводили поведенческие тесты «Открытое поле», «Приподнятый крестообразный лабиринт» и «Водный лабиринт Морриса». У мышей APPswe/ PS1dE9 (n = 5) и мышей дикого типа линии C57BL/6J (n = 5) в возрасте 1 года забирали головной мозг и образцы желудка, тонкой и толстой кишки и фиксировали их в жидкости Карнуа. Наличие амилоидных отложений в головном мозге оценивали после окрашивания срезов сульфатированным альциановым синим и с помощью антител против бета-амилоида. Для оценки морфологических особенностей клеток энтеральной нервной системы использовали антитела против периферина, синаптофизина, глиального фибриллярного кислого белка (GFAP, glial fibrillary acidic protein) и кальций-связывающего белка B группы S100 (S100B, S100 calcium-binding protein B). Учитывали количество структур, позитивно окрашенных перечисленными методами. Характер распределения переменных в выборках оценивали с помощью теста Шапиро – Уилка. Для оценки межгрупповых различий использовали t-критерий Стьюдента и однофакторный дисперсионный анализ ANOVA.
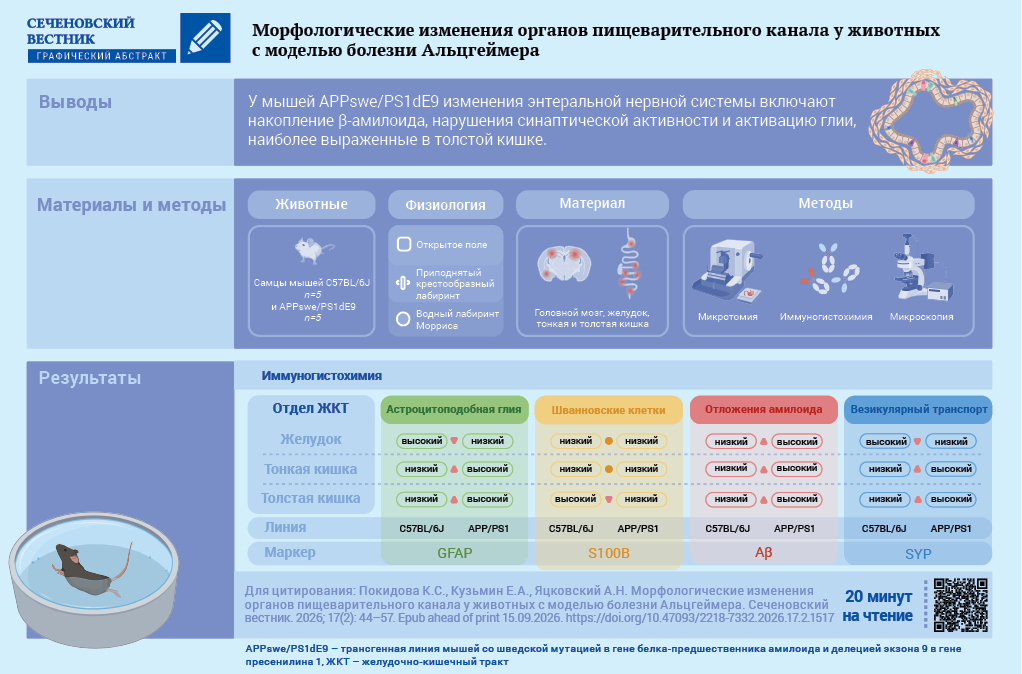
Результаты. У экспериментальных животных в головном мозге были обнаружены амилоидные отложения. В сравнении с контрольной группой у животных линии APPswe/PS1dE9 во всех изученных органах желудочно-кишечного тракта отмечено депонирование бета-амилоида в нейронах интрамуральных ганглиев. У этих же животных имели место усиление реакции с антителами против синаптофизина в нейронах тонкой и толстой кишки, активация GFAP+ глии. Во всех отделах желудочно-кишечного тракта вне межмышечного сплетения было обнаружено увеличение количества S100В+ клеток.
Заключение. У мышей APPswe/PS1dE9 морфологические изменения структурных компонентов энтеральной нервной системы во многом отражают изменения, характерные для структур центральной нервной системы при данной модели.
Болезнь Альцгеймера (БА) – нейродегенеративное заболевание, которое характеризуется постепенным развитием морфологических изменений, приводящих к глубокой деменции. Ключевым молекулярным событием патогенеза служит нарушение протеолиза белка-предшественника амилоида (APP, amyloid precursor protein) [1]. Это событие инициирует образование склонных к агрегации бета-амилоидных пептидов (Aβ, amyloid beta). Вследствие особенностей конформации Aβ необратимо полимеризуется и откладывается в нейропиле различных участков центральной нервной системы (ЦНС), формируя депозиты. Это приводит к развитию нейровоспаления, сопровождающегося астроглиозом, микроглиозом и гибелью нейронов [2]. Aβ формирует амилоидные бляшки, накапливается периваскулярно, внутриклеточно и поступает в ликвор и кровь.
Долгое время БА рассматривалась преимущественно как патология ЦНС. Однако данные о вовлечении периферических тканей указывают на потенциальную роль желудочно-кишечного тракта (ЖКТ) и энтеральной нервной системы в развитии заболевания. В частности, в ЖКТ человека, включая структуры энтеральной нервной системы, выявлена экспрессия APP и APP-подобных белков, что не исключает формирования в ней отложений Aβ [3]. Вместе с тем прямые доказательства специфического накопления Aβ в энтеральных нейронах у пациентов с БА остаются ограниченными. Более ранние исследования показали наличие Aβ-депозитов в ненейральных тканях и сосудах, включая кишечник, однако их клеточная и анатомическая локализация в стенке кишки требует осторожной интерпретации [4].
Данные о связи Aβ с ЖКТ были получены в исследовании, где у пациентов с БА обнаруживали повышенные уровни агрегатов Aβ в кале [5]. Однако источник этих агрегатов остается неясным: они могут происходить как из энтеральной нервной системы, так и поступать в кишечник через другие пути, включая гепатобилиарную экскрецию. Кроме того, у пациентов с деменцией описаны признаки нарушения кишечного барьера, включая повышение диаминоксидазы и растворимого кластера дифференцировки 14, что может отражать повышенную кишечную проницаемость и эндотоксиновую нагрузку [6]. Сходно, повышение сывороточного зонулина у пациентов с БА указывает на возможную дисрегуляцию эпителиального барьера, хотя эти данные не являются прямым морфологическим доказательством повреждения плотных контактов кишечного эпителия [7].
Наряду с барьерной дисфункцией при БА обсуждается роль кишечного воспаления. Повышенные уровни фекального кальпротектина ассоциированы с возрастом и БА-патологией, что указывает на связь кишечного воспаления с нейродегенеративным процессом [8]. Функциональные нарушения кишечника также могут иметь клиническое значение: запор у пациентов с БА ассоциирован с более быстрым снижением когнитивных функций и прогрессированием изменений белого вещества [9]. Тем не менее большинство этих данных носит ассоциативный характер и не доказывает причинную роль кишечных изменений в патогенезе БА.
Для более подробного изучения БА было разработано множество вариантов животных трансгенных линий, представленных в основном на мышах, несущих человеческие мутантные гены APP и PS1 (presenilin 1, пресенилин 1). Ряд линий демонстрирует выраженный церебральный амилоидоз, однако функциональные нарушения ЖКТ описаны лишь для некоторых из них: мышей линий Tg2576 (transgenic line 2576, трансгенная линия 2576) [10] и 5xFAD (five familial Alzheimer's disease mutations, с пятью мутациями семейной формы болезни Альцгеймера) [11], а сочетание функциональных и морфологических изменений – для мышей линий APP/PS1 [12] и APP23 [13].
Наиболее перспективной линией является APP/PS1 – APPswe/PS1dE9 (amyloid precursor protein with the Swedish mutation / presenilin 1 deleted exon 9 line, трансгенная линия мышей со шведской мутацией в гене белка-предшественника амилоида и делецией экзона 9 в гене пресенилина 1), у которой в возрасте старше 1 года регистрируются амилоидоз мышечной оболочки толстой кишки, ускоренный кишечный транзит и снижение пула NO-ергических нейронов [12].
Вместе с тем данные о внутриклеточном накоплении Aβ в нейронах кишечных сплетений остаются фрагментарными. Наблюдается дефицит сведений о реакции энтеральной глии, в частности GFAP+ (glial fibrillary acidic protein, глиальный фибриллярный кислый белок) и S100B+ (S100 calcium-binding protein B, кальций-связывающий белок B группы S100) клеток, играющих ключевую роль в патогенезе нейровоспаления в ЦНС.
В эксперименте использовались самцы мышей дикого типа линии C57BL/6J и самцы мышей линии APPswe/PS1dE9 на том же генетическом фоне (n = 5 в каждой группе). До исследования допускались особи без сопутствующих патологий. Мыши получены из вивария ФГАОУ ВО «Первый МГМУ им. И.М. Сеченова» Минздрава России (Сеченовский Университет). Исследование проводилось без применения слепого метода.
После прохождения двухнедельного карантина и осмотра ветеринарным врачом животные дикого типа и трансгенные мыши разводились в виварии в соответствии со всеми этическими нормами и требованиями к условиям содержания. В возрасте 2 месяцев животных генотипировали методом полимеразной цепной реакции с последующим гель-электрофорезом. По результатам генотипирования животных распределяли на две группы: интактную группу (без патологии), включавшую животных дикого типа, и экспериментальную группу, включавшую трансгенных мышей с моделью БА. Отбор животных производился методом случайных чисел. После формирования экспериментальной группы исключений не происходило. До достижения годовалого возраста животные содержались в виварии при температуре 22 °С и влажности воздуха 55–60% с доступом к чистой воде и гранулированному корму ad libitum.
По достижении животными возраста 1 года для дополнительной валидации проводили классические для изучения БА поведенческие тесты: «Открытое поле», «Приподнятый крестообразный лабиринт», «Водный лабиринт Морриса». Тесты проводились последовательно, с достаточными перерывами и обязательным соблюдением этапа привыкания к каждому тесту. Для оценки горизонтальной активности животных в поведенческих тестах использовалось программное обеспечение PoKi v0.0.1, с помощью которого осуществлялись детекция мыши, построение тепловых карт и получение данных о нахождении в зонах теста [14].
После того как животные прошли все поведенческие тесты, их анестезировали ксилазином в дозе 5 мг/кг (Interchemie, Кастенрее, Нидерланды) и тилетамином/золазепамом в дозе 40 мг/кг (Золетил-100; Virbac, Каррос, Франция), после чего умерщвляли путем перфузии 0,002% раствором гепарина с последующим выполнением процедуры прижизненной фиксации жидкостью Карнуа.
В начале иссекалась кожа головы, оголялся череп и происходил забор головного мозга. Далее рассекалась брюшная полость, выделялись желудок и кишечник. Аутопсийный материал желудка, тонкой и толстой кишки разделялся на три соответствующих участка, продольно разрезался, промывался раствором фиксатора и закручивался по технологии «швейцарский рулет». После все образцы проходили дополнительную фиксацию в жидкости Карнуа в течение 24 часов, затем их интенсивно промывали, проводили по изопропиловым спиртам и заливали в парафин.
Резка препаратов желудка и кишечника производилась на ротационном микротоме HM325 (Thermo Fisher Scientific, Уолтем, США) поперечно виткам органа, а препараты головного мозга – на корональные срезы. Все препараты были нарезаны толщиной 3 мкм. Для лучшей фиксации препаратов использовали адгезивные стекла с силановым покрытием и подсушивали при температуре 56 °С.
Для идентификации амилоидных внеклеточных отложений в головном мозге использовалось общеморфологическое окрашивание сульфатированным альциановым синим (SAB, sulfated alcian blue) с докрашиванием нейтральным красным по Нисслю.
Часть препаратов использовали для иммуногистохимического исследования. Демаскировка происходила в демаскировочном буфере (One-step Dewaxing/Antigen Retrieval Buffer pH 9, каталог: E-IR-R220A, лот: XF05RT4N9592, Elabscience, Ухань, КНР) в течение 20 минут при температуре 98 °C и давлении 105 кПа. После остывания срезы промывали трижды в 10% фосфатно-солевом буфере (PBS, phosphate-buffered saline) (ООО «Эко-Сервис», Санкт-Петербург, Российская Федерация) и инкубировали с перекисью водорода в течение 30 минут в термостате 37 °C. После инкубации срезы трижды промывали PBS и инкубировали с 1% бычьим сывороточным альбумином (партия RM-T1725/1000, Biosera, Нуайе, Франция) в течение 30 минут в термостате 37 °C. Затем наносили первичные антитела и срезы инкубировали в течение 18 часов при комнатной температуре.
Для определения бета-амилоидных отложений использовали поликлональные кроличьи антитела против Aβ (1:200, каталог E-AB-15509, лот DM04J4P29901, Elabscience, Ухань, КНР). Для визуализации периферической нервной системы использовали поликлональные куриные антитела против периферина (1:1000, каталог GTX85464, лот 822503406, GeneTex, Ирвин, США). Для оценки синаптической иннервации использовали поликлональные кроличьи антитела против синаптофизина (SYP, synaptophysin; 1:200, каталог O407-2, лот HG0614, Huabio, Ханчжоу, КНР). Для оценки энтеральной глии и астроцитов в головном мозге использовали моноклональные кроличьи антитела против GFAP (1:500, клон SA03-04, каталог ET1601-23, лот HO0913, Huabio, Ханчжоу, КНР) и моноклональные кроличьи антитела против S100B (1:1000, клон SC57-02, каталог ET-1610-3, лот H661380007, Huabio, Ханчжоу, КНР).
После инкубации срезы желудка и кишечника трижды промывали PBS и наносили вторичные козьи антитела против кроличьих IgG, конъюгированные с флуорофором TRITC (tetramethylrhodamine isothiocyanate, тетраметилродаминизотиоцианат) (Goat Anti-Rabbit-TRITC, 1:100, каталог E-AB-1053, лот 22038, Elabscience, Ухань, КНР) и против куриного IgY, конъюгированные с FITC (fluorescein isothiocyanate, флуоресцеинизотиоцианат) (Goat Anti-Chicken-IgY-FITC, 1:1000, каталог GTX26873, лот 822503077, GeneTex, Ирвин, США), в них срезы инкубировали в течение 2 часов в термостате 37 °C. Затем срезы трижды промывали PBS и окрашивали ядерным красителем DAPI (4’,6-diamidino-2-phenylindole, 4’,6-диамидино-2-фенилиндол) (каталог E-IR-R103, Elabscience, Ухань, КНР) в течение 15 минут в термостате 37 °C. После срезы промывали, проводили по спиртам с повышением концентрации, просветляли в ксилоле и заключали в ксилолсодержащую среду Витрогель.
Препараты головного мозга после инкубации с первичными антителами также промывали в PBS и наносили вторичные козьи антитела с пероксидазой хрена (Goat Anti-Rabbit-HRP, ready to use, каталог HA1119, лот M05-22-P2, Huabio, Ханчжоу, КНР). Затем производили промывку в PBS, в качестве хромогена использовали 3,3’-диаминобензидин (CDH, Нью-Дели, Индия), инкубацию проводили в течение 1–2 минут, затем промывали дистиллированной водой и докрашивали препараты гематоксилином Карацци с последующим заключением в монтирующую среду.
Визуализация и гистологический анализ проводились с помощью микроскопа AxioImager.A1, камеры Axiocam 305 color и программного обеспечения Zeiss Zen 3.10 (Zeiss, Йена, Германия). Фотографирование препаратов, окрашенных иммунофлуоресцентным методом, проводили при длинах волн от 359 до 461 нм для DAPI, от 495 до 519 нм для FITC и от 557 до 576 нм для TRITC.
Измеряли площадь SYP+ сплетений с помощью классического инструмента работы с площадью Fiji 2.17.0. Для оценки структуры GFAP+ энтеральной глии использовали программное обеспечение с открытым исходным кодом CellSkeletDetector v0.0.2 [15]. Подсчитывали количество GFAP+ глии и бета-амилоидные скопления в головном мозге, Аβ+ нейроны в сплетениях, S100B+ клеток в и вне межмышечного сплетения.
Для определения минимально допустимого размера выборки был проведен пилотный эксперимент, на основе которого было рассчитано наименьшее значение для оценки статистической значимости возможных различий между группами. Нормальность распределения проверяли тестом Шапиро – Уилка. При подтверждении нормальности распределения (p > 0,05) для оценки достоверности различий между двумя независимыми группами использовали t-критерий Стьюдента. При сравнении показателей по Aβ, GFAР и S100B между отделами ЖКТ применяли однофакторный дисперсионный анализ (analysis of variance, ANOVA) с апостериорным тестом Тьюки. Различия между групповыми выборками считались значительными для p < 0,05 и статистической мощности более 0,8. Статистические подсчеты выполнены с помощью GraphPad Prism 10.4.0 (GraphPad Software, Сан-Диего, США).
Тепловые карты траекторий движения животных в поведенческих тестах представлены на рис. 1А. В тесте «Открытое поле» мыши APPswe/PS1dE9 по сравнению с животными дикого типа демонстрировали увеличение общей пройденной дистанции (рис. 1В) и средней скорости движения (рис. 1С), а также снижение числа остановок (рис. 1D). Одновременно у APPswe/PS1dE9 отмечалось увеличение числа заходов в центральную зону теста (рис. 1Е). Данные изменения указывают на выраженное повышение двигательной активности у мышей APPswe/PS1dE9.
В тесте «Приподнятый крестообразный лабиринт» мыши APPswe/PS1dE9 показали аналогичные результаты повышения общей дистанции (рис. 1F). Для трансгенных животных было характерно увеличение числа входов в закрытые рукава, что дополнительно указывает на усиление локомоторной активности (рис. 1Н). При этом не было показано различий в переходах в открытые рукава для животных дикого типа и APPswe/PS1dE9 (рис. 1G), что говорит об отсутствии явных признаков повышения тревожности. Повышенное время пребывания в центральной зоне может отражать более частые переходы между участками лабиринта, усиленное исследовательское поведение (рис. 1I).
После прохождения 5-дневного обучения с платформой в тесте «Водный лабиринт Морриса» оценивалось плавание мышей без платформы. Мыши APPswe/PS1dE9 проводили меньше времени в целевом квадранте с мнимой платформой по сравнению с животными дикого типа (рис. 1J). Кроме того, у APPswe/PS1dE9 было снижено количество пересечений зоны с мнимой платформой (рис. 1К) и увеличено латентное время достижения зоны платформы (рис. 1L). При этом скорость плавания между животными дикого типа и APPswe/PS1dE9 была статистически не различима (рис. 1М). Эти изменения свидетельствуют о нарушении сохранности пространственной памяти и снижении точности поиска прежнего местоположения платформы у животных APPswe/PS1dE9.

РИС. 1. Поведенческие тесты для оценки двигательной активности.
А. Тепловые карты траекторий, полученные на основе прохождения животными поведенческих тестов для мышей WT (слева) и APPswe/PS1dE9 (справа): тест «Открытое поле» (верхний ряд), тест «Приподнятый крестообразный лабиринт» (средний ряд) и тест «Водный лабиринт Морриса» (нижний ряд).
В. Общая дистанция в тесте «Открытое поле».
С. Общая скорость в тесте «Открытое поле».
D. Количество остановок в тесте «Открытое поле».
Е. Число заходов в центр в тесте «Открытое поле».
F. Общая дистанция в тесте «Приподнятый крестообразный лабиринт».
G. Соотношение входов в открытые участки с общим числом входов в тесте «Приподнятый крестообразный лабиринт».
Н. Число входов в закрытые участки в тесте «Приподнятый крестообразный лабиринт».
I. Время в центральной зоне в тесте «Приподнятый крестообразный лабиринт».
J. Время нахождения в целевом квадранте в тесте «Водный лабиринт Морриса».
К. Количество пересечений платформы в тесте «Водный лабиринт Морриса».
L. Латентное время нахождения мнимой платформы в тесте «Водный лабиринт Морриса».
М. Общая скорость в тесте «Водный лабиринт Морриса».
Примечания: * p < 0,05; ** p < 0,01; *** p < 0,001.
APPswe/PS1dE9 – трансгенная линия мышей с моделью болезни Альцгеймера; WT – wild-type mice, мыши дикого типа.
Гистохимическое исследование с использованием модифицированного метода SAB выявило депозиты, характеризующиеся неравномерным распределением по всему мозгу (рис. 2А). С помощью SAB были выявлены многочисленные отложения у мышей APPswe/PS1dE9 в зонах СА1, СА3 и зубчатой извилине гиппокампа и коре больших полушарий головного мозга.
Иммуногистохимическое исследование с использованием антител против Aβ подтвердило, что окрашенные SAB структуры являются амилоидными бляшками (рис. 2F). Окрашивание против Аβ также выявило внутриклеточную локализацию отложений, в особенности у клеток микроокружения бляшек (рис. 2F). При исследовании изокортекса наибольшее число отложений было выявлено в зоне СА1 гиппокампа и первичной аудиальной коре (рис. 2В и 2С). У животных дикого типа реакции против Аβ выявлено не было.
Иммуногистохимическое исследование против GFAP выявило выраженное повышение его активации в коре больших полушарий и гиппокампе мышей APPswe/PS1dE9 (рис. 2G). В свою очередь, у животных дикого типа обнаруживались единичные GFAP+ клетки на поле зрения в аналогичных зонах мозга (рис. 2D и 2Е).

РИС. 2. Морфологическая оценка амилоидной патологии в центральной нервной системе.
А. Препараты головного мозга мыши APPswe/PS1dE9, окрашенные сульфатированным альциановым синим с докрашиванием нейтральным красным по Нисслю.
В. Количество бляшек в СА1.
С. Количество бляшек в слуховой коре.
D. Количество GFAP+ клеток в СА1.
E. Количество GFAP+ клеток в слуховой коре.
F. Препараты головного мозга мышей APPswe/PS1dE9 (слева) и дикого типа (справа): СА1 зона гиппокампа (верхний ряд), слуховая кора (нижний ряд), об. ×40. Размер шкалы: 50 мкм. Anti-Аβ и 3,3’-диаминобензидин.
G. Препараты головного мозга мышей APPswe/PS1dE9 (слева) и дикого типа (справа): СА1 зона гиппокампа (верхний ряд), слуховая кора (нижний ряд), об. ×40. Размер шкалы: 50 мкм. Anti-GFAP и 3,3’-диаминобензидин.
Примечания: *** p < 0,001.
Aβ – amyloid beta, бета-амилоид; APPswe/PS1dE9 – трансгенная линия мышей с моделью болезни Альцгеймера; GFAP – glial fibrillary acidic protein, глиальный фибриллярный кислый белок; SAB – sulfated alcian blue, сульфатированный альциановый синий; WT – wild-type mice, мыши дикого типа.
С помощью иммуногистохимического анализа против Aβ было показано наличие цитоплазматического окрашивания в нейронах межмышечного сплетения APPswe/PS1dE9 (рис. 3А). У животных дикого типа не наблюдается окрашивания против Аβ. При сравнении числа положительно окрашенных нейронов в межмышечном сплетении между желудком и тонкой кишкой разница не была выявлена (рис. 3В). Окрашивание против Аβ в толстой кишке показало, что количество позитивных нейронов в поле зрения было значимо больше, чем в желудке и тонкой кишке.

РИС. 3. Иммунофлуоресцентное выявление бета-амилоида в органах желудочно-кишечного тракта у мышей дикого типа и с моделью болезни Альцгеймера.
А. Препараты органов желудочно-кишечного тракта мышей WT (верхний ряд) и APPswe/PS1dE9 (нижний ряд): желудка (слева), тонкой кишки (посередине) и толстой кишки (справа), об. ×40. Размер шкалы: 50 мкм. Anti-Аβ и DAPI. Белые стрелки: Аβ+ межмышечные сплетения.
В. Количество Аβ+ нейронов.
Примечания: *** p < 0,001.
Aβ – amyloid beta, бета-амилоид; APPswe/PS1dE9 – трансгенная линия мышей с моделью болезни Альцгеймера; DAPI – 4′,6-diamidino-2-phenylindole, 4′,6-диамидино-2-фенилиндол; eTM – external tunica muscularis, наружный слой мышечной оболочки; iTM – inner tunica muscularis, внутренний слой мышечной оболочки; mTM – middle tunica muscularis, средний слой мышечной оболочки; TMuc – tunica mucosa, слизистая оболочка; TS – tela submucosa, подслизистая основа; WT – wild-type mice, мыши дикого типа.
Для оценки везикулярного транспорта в нейронах межмышечного сплетения использовалась иммуногистохимическая реакция с антителами против SYP. У животных APPswe/PS1dE9 в энтеральных нейронах тонкой и толстой кишки было выявлено повышение площади окрашивания против SYP (рис. 4А и 4В). В свою очередь, в межмышечном сплетении желудка окрашивание SYP в среднем занимало меньшую площадь у APPswe/PS1dE9, чем у животных дикого типа.

РИС. 4. Иммунофлуоресцентное выявление синаптофизина в органах желудочно-кишечного тракта у мышей дикого типа и с моделью болезни Альцгеймера.
А. Препараты органов желудочно-кишечного тракта мышей WT (верхний ряд) и APPswe/PS1dE9 (нижний ряд): желудка (слева), тонкой кишки (посередине) и толстой кишки (справа), об. ×40. Размер шкалы: 50 мкм. Anti-SYP и DAPI. Белые стрелки: SYP+ межмышечные сплетения, зеленые стрелки: синаптическая активность вне сплетений, красные стрелки: SYP+ подслизистые сплетения.
В. Площадь SYP+ сплетений.
Примечания: * p < 0,05; ** p < 0,01; *** p < 0,001.
APPswe/PS1dE9 – трансгенная линия мышей с моделью болезни Альцгеймера; DAPI – 4′,6-diamidino-2-phenylindole, 4′,6-диамидино-2-фенилиндол; eTM – external tunica muscularis, наружный слой мышечной оболочки; iTM – inner tunica muscularis, внутренний слой мышечной оболочки; mTM – middle tunica muscularis, средний слой мышечной оболочки; SYP – synaptophysin, синаптофизин; TMuc – tunica mucosa, слизистая оболочка; TS – tela submucosa, подслизистая основа; WT – wild-type mice, мыши дикого типа.
Иммуногистохимическое исследование с использованием маркеров GFAP и S100B позволило оценить реакцию со стороны двух популяций энтеральной глии (рис. 5A–F). В межмышечном сплетении кишечника наблюдалось увеличение реактивности GFAP+ глии (рис. 5А). Это проявлялось увеличением числа и степени разветвленности отростков по данным скелетизации (рис. 5B и C). В межмышечном сплетении желудка наблюдаются обратные эффекты. Степень ветвления GFAP+ глии выраженно снижается, притом что количество узлов остается на уровне животных дикого типа.

РИС. 5. Иммунофлуоресцентное выявление глиального фибриллярного кислого белка в органах желудочно-кишечного тракта у мышей дикого типа и с моделью болезни Альцгеймера.
А. Препараты органов желудочно-кишечного тракта мышей WT (верхний ряд) и APPswe/PS1dE9 (нижний ряд): желудка (слева), тонкой кишки (посередине) и толстой кишки (справа), об. ×40. Размер шкалы: 50 мкм. Anti-GFAP, anti-PRPH1 и DAPI.
В. Количество узлов в нервном сплетении.
С. Количество ветвей в нервном сплетении.
D. Препараты желудка (верхний ряд) и скелетизация нервного сплетения (нижний ряд) мышей WT (слева) и APPswe/PS1dE9 (справа).
E. Препараты тонкой кишки (верхний ряд) и скелетизация нервного сплетения (нижний ряд) мышей WT (слева) и APPswe/PS1dE9 (справа).
F. Препараты толстой кишки (верхний ряд) и скелетизация нервного сплетения (нижний ряд) мышей WT (слева) и APPswe/PS1dE9 (справа).
Примечания: *** p < 0,001.
APPswe/PS1dE9 – трансгенная линия мышей с моделью болезни Альцгеймера; DAPI – 4′,6-diamidino-2-phenylindole, 4′,6-диамидино-2-фенилиндол; eTM – external tunica muscularis, наружный слой мышечной оболочки; GFAP – glial fibrillary acidic protein, глиальный фибриллярный кислый белок; iTM – inner tunica muscularis, внутренний слой мышечной оболочки; mTM – middle tunica muscularis, средний слой мышечной оболочки; PRPH – peripherin, периферин; TMuc – tunica mucosa, слизистая оболочка; TS – tela submucosa, подслизистая основа; WT – wild-type mice, мыши дикого типа.
S100B в желудке и кишечнике экспрессируется популяцией глии, подобной шванновским клеткам. У мышей S100B+ клетки локализуются как в межмышечном и подслизистом сплетениях, так и вдоль нервных волокон в подслизистом слое (рис. 6А). Иммуногистохимическое исследование с антителами против S100B в межмышечном сплетении желудка и тонкой кишки не выявило значимых отличий (рис. 6В). В свою очередь, наблюдалось снижение числа S100B+ клеток в межмышечном сплетении толстой кишки APPswe/PS1dE9. При исследовании активности S100B вне сплетений в подслизистой и мышечной оболочках обнаружилось увеличение реакции во всех отделах ЖКТ у животных APPswe/PS1dE9 (рис. 6С).

РИС. 6. Иммунофлуоресцентное выявление кальций-связывающего белка B группы S100 в органах желудочно-кишечного тракта у мышей дикого типа и с моделью болезни Альцгеймера.
А. Препараты органов желудочно-кишечного тракта мышей WT (верхний ряд) и APPswe/PS1dE9 (нижний ряд): желудка (слева), тонкой кишки (посередине) и толстой кишки (справа), об. ×40. Размер шкалы: 50 мкм. Anti-S100B и DAPI. Белые стрелки: S100B положительные клетки в межмышечных сплетениях, зеленая стрелка: S100B положительные клетки в подслизистой основе, красные стрелки: S100B положительные клетки в подслизистых сплетениях.
В. Количество S100B+ клеток в сплетении.
С. Количество S100B+ клеток вне сплетения.
Примечания: *** p < 0,001.
APPswe/PS1dE9 – трансгенная линия мышей с моделью болезни Альцгеймера; DAPI – 4′,6-diamidino-2-phenylindole, 4′,6-диамидино-2-фенилиндол; eTM – external tunica muscularis, наружный слой мышечной оболочки; iTM – inner tunica muscularis, внутренний слой мышечной оболочки; mTM – middle tunica muscularis, средний слой мышечной оболочки; S100B – S100 calcium-binding protein B, кальций-связывающий белок B группы S100; TMuc – tunica mucosa, слизистая оболочка; TS – tela submucosa, подслизистая основа; WT – wild-type mice, мыши дикого типа.
В нашем исследовании у животных APPswe/PS1dE9 была повышена двигательная активность при прохождении тестов «Открытое поле» и «Приподнятый крестообразный лабиринт», которая характеризовалась увеличением общей дистанции и средней скорости. Также животные осуществили меньше остановок и больше заходили в центральную часть обоих тестов. Полученные результаты согласуются с ранее описанными в литературе данными о нарушении поведенческой активности у трансгенных животных с моделью БА. В работе R. Lalonde et al. [16] у 12-месячных мышей APP(695)swe/co+PS1dE9 было показано, что трансгенные животные демонстрируют изменения исследовательской активности в тестах «Открытое поле» и «Приподнятый крестообразный лабиринт», которые характеризовались увеличением времени нахождения в открытых рукавах в тесте «Приподнятый крестообразный лабиринт», увеличением дистанции в центральной зоне в тесте «Открытое поле».
При прохождении теста «Водный лабиринт Морриса» животные APPswe/PS1dE9 проводили меньше времени в квадранте с мнимой платформой, реже пересекали зону мнимой платформы и дольше достигали этой зоны по сравнению с животными дикого типа, что свидетельствует о снижении пространственной памяти у трансгенных животных. Похожие результаты были получены в работе L. Fu et al. [17] у животных APPswe/PS1dE9. Было показано прогрессирующее снижение пространственной памяти у трансгенных животных, которое характеризовалось снижением числа пересечений зоны платформы, уменьшением времени и дистанции в целевом квадранте по сравнению с животными дикого типа.
У животных APPswe/PS1dE9 было выявлено избыточное накопление бета-амилоидных бляшек в головном мозге. Это было показано в зоне СА1 гиппокампа и первичной слуховой коре. По данным литературы, эти зоны мозга являются основными, в которых выявляются бета-амилоидные агрегаты [18][19]. Отложение бляшек сопровождалось выраженным астроглиозом. Подобные изменения являются классическими для данной трансгенной линии и подтверждают воспроизведение основных признаков модели [20].
Наше исследование демонстрирует, что у мышей линии APPswe/PS1dE9 в возрасте 1 год в желудке, тонкой и толстой кишках развиваются выраженные морфологические изменения. Патологический процесс активно протекает в нейронах и энтеральной глии межмышечного сплетения. Выявлена зависимость степени нарушений во всех слоях в краниокаудальном направлении. Это подтверждается современными исследованиями, которые описывают дистальную часть толстой кишки, как основное место поражения у мышей APPswe/PS1dE9 [12]. В литературе описано отсутствие кишечных проявлений у мышей линии 5xFAD, которая, в свою очередь, характеризуется более агрессивным амилоидозом в ЦНС в связи с наличием большего числа мутаций APP и PS1. Можно предположить, что наличие изменений в ЖКТ связано с особенностью генетической кассеты APPswe/PS1dE9, которая находится под контролем прионного промотора. Вероятно, и другие линии, экспрессирующие мутантные гены, связанные с БА, под контролем прионного промотора, будут также характеризоваться кишечными проявлениями. Это подтверждается наличием изменений энтеральной нервной системы у животных линии TgCRND8, которая также имеет прионный промотор [21].
С точки зрения амилоидной патологии ключевыми наблюдениями стали выраженные цитоплазматические изменения в энтеральных нейронах. Они проявляются не только внутриклеточным накоплением Aβ, но и, по-видимому, нарушением их секреторной функции, на что косвенно указывает повышение уровня SYP. Накопления Aβ в большей степени были выражены в цитоплазме нейронов межмышечного сплетения толстой кишки. Наши данные согласуются с представленными в литературе исследованиями иммунореактивности Aβ с помощью иммуноферментного анализа, где у мышей APPswe/PS1dE9 и у гуманизированной линии AppNL-G-F было показано возрастание Aβ1-40 и Aβ1-42 форм амилоида в толстой кишке в 3, 6 и 12 месяцев [22]. Также имеются данные о наличии повышенной иммунореактивности, определенной по иммуноферментному анализу, в отделах тонкой кишки трансгенных животных с гиперэкспрессией мутантных форм Aβ [23]. В литературе описано, что у мышей APPswe/PS1dE9 накопление Aβ в энтеральной нервной системе приводит к гибели энтеральных nNOS+ нейронов [24].
В нашем исследовании было определено, что нарушения работы нейронов могут быть связаны с нарушением везикулярного транспорта за счет изменения активности SYP. Явное повышение иммунореактивности SYP в нейронах межмышечного сплетения было показано в кишечнике мышей APPswe/PS1dE9. Такое состояние может быть связано с нейрональным стрессом и возникает при ряде патологий ЖКТ воспалительной этиологии.
Примечательно, что энтеральная глия реагирует на отложение амилоида по механизму, сходному с реакцией астроцитов в ЦНС при БА. Выявленные нами морфологические признаки активации глиальных клеток свидетельствуют о запуске нейровоспалительного каскада в кишечной стенке, аналогичного центральному глиозу. GFAP считается маркером астроцитоподобного типа энтеральной глии, которая по функции и генной сигнатуре соответствует астроцитам ЦНС [25]. По результатам иммуногистохимического исследования выявлено повышение GFAP-иммунореактивности в кишечнике, наиболее выраженное в толстой кишке. Данное наблюдение дополнительно доказывает, что характер развития патологии распространяется в краниокаудальном направлении.
Увеличение иммунореактивности S100В, маркирующего популяцию немиелинизирующих шванновских клеток (нейролеммоцитарную энтеральную глию), свидетельствует об усилении их трофической и модуляторной активности вне межмышечного сплетения мышей APPswe/PS1dE9 [26]. Можно полагать, что в условиях накопления Aβ вне межмышечного сплетения избыточное высвобождение S100В изменяет кальциевый гомеостаз и возбудимость энтеральных нейронов, внося вклад в развитие моторных нарушений толстой кишки.
Основным ограничением исследования является то, что изменения в энтеральных сплетениях человека при БА могут быть выражены значительно сильнее, чем изменения, воспроизводимые на животных моделях. У лабораторных грызунов соответствующий фенотип, как правило, формируется при наличии мутаций генов APP, PS1; при этом такие модели не воспроизводят нейрофибриллярную патологию, играющую важную роль в развитии БА у человека. В свою очередь, основной вариант БА у человека (около 95% случаев) является спорадическим, что затрудняет его воспроизведение у грызунов. Кроме того, профиль экспрессии большинства промоторов у мышиных линий зачастую не соответствует профилю экспрессии генов APP и PS1 у человека. Дополнительным ограничением является проведение исследования без применения слепого метода.
Наиболее перспективной задачей является исследование фармакологических и биологических факторов, которые могут влиять на прогрессирование кишечных проявлений БА. Особый интерес представляет изучение факторов, способных замедлить развитие патологических изменений в ЦНС за счет снижения эффектов Aβ в ткани кишечника. Особого внимания заслуживают исследования на недавно полученных мышиных линиях с мутациями генов APOE4 и TREM2, которые связаны со спорадическими формами БА.
В настоящей работе изучены качественные и количественные морфологические изменения в желудке, тонкой и толстой кишках у мышей APPswe/PS1dE9 с моделью болезни Альцгеймера. Выявлено, что изменения усиливаются от проксимальных к дистальным отделам ЖКТ и характеризуются изменениями в нейронах и энтеральной глии.
А.Н. Яцковский: разработка концепции и дизайна исследования, научное редактирование рукописи. К.С. Покидова: проведение эксперимента, изготовление гистологических препаратов, статистическая обработка данных, анализ литературных источников, подготовка текста рукописи, оформление иллюстраций. Е.А. Кузьмин: проведение гистологических и иммуногистохимических исследований, анализ литературных источников, подготовка текста рукописи, оформление иллюстраций. Все авторы утвердили окончательную версию статьи.
Соответствие принципам этики. Исследование проведено с соблюдением положений Европейской конвенции о защите позвоночных животных, которые используются для экспериментальных и других научных целей. Все манипуляции с животными проведены в соответствии с разрешением Локального этического комитета ФГАОУ ВО «Первый МГМУ им. И.М. Сеченова» Минздрава России № 04-23 от 02.03.2023.
Доступ к данным исследования. Данные, подтверждающие выводы этого исследования, могут быть получены у автора, ответственного за переписку, по обоснованному запросу.
Конфликт интересов. Авторы заявляют об отсутствии конфликта интересов.
Финансирование. Исследование не имело спонсорской поддержки (собственные ресурсы).
Использование искусственного интеллекта. Инструменты искусственного интеллекта не использовались при подготовке данной рукописи.
1. Behl C. In 2024, the amyloid-cascade-hypothesis still remains a working hypothesis, no less but certainly no more. Front Aging Neurosci. 2024 Sep; 16: 1459224. https://doi.org/10.3389/fnagi.2024.1459224. PMID: 39295642
2. Kamatham P.T., Shukla R., Khatri D.K., Vora L.K. Pathogenesis, diagnostics, and therapeutics for Alzheimer's disease: Breaking the memory barrier. Ageing Res Rev. 2024 Nov; 101: 102481. https://doi.org/10.1016/j.arr.2024.102481. Epub 2024 Sep 3. PMID: 39236855
3. Cabal A., Alonso-Cortina V., Gonzalez-Vazquez L.O., et al. beta-Amyloid precursor protein (beta APP) in human gut with special reference to the enteric nervous system. Brain Res Bull. 1995; 38(5): 417-423. https://doi.org/10.1016/0361-9230(95)02006-d. PMID: 8665264
4. Joachim C.L., Mori H., Selkoe D.J. Amyloid beta-protein deposition in tissues other than brain in Alzheimer's disease. Nature. 1989 Sep; 341(6239): 226-230. https://doi.org/10.1038/341226a0. PMID: 2528696
5. Pils M., Dybala A., Schaffrath A., et al. Elevated Aβ aggregates in feces from Alzheimer's disease patients: a proof-of-concept study. Alzheimers Res Ther. 2024 Oct; 16(1): 223. https://doi.org/10.1186/s13195-024-01597-3. PMID: 39402637
6. Stadlbauer V., Engertsberger L., Komarova I., et al. Dysbiosis, gut barrier dysfunction and inflammation in dementia: a pilot study. BMC Geriatr. 2020 Jul; 20(1): 248. https://doi.org/10.1186/s12877-020-01644-2. PMID: 32690030
7. Wang X., Liu G.J., Gao Q., et al. C-type lectin-like receptor 2 and zonulin are associated with mild cognitive impairment and Alzheimer's disease. Acta Neurol Scand. 2020 Mar; 141(3): 250-255. https://doi.org/10.1111/ane.13196. Epub 2019 Nov 25. PMID: 31715011
8. Heston M.B., Hanslik K.L., Zarbock K.R., et al. Gut inflammation associated with age and Alzheimer’s disease pathology: a human cohort study. Sci Rep. 2023 Nov; 13(1): 18924. https://doi.org/10.1038/s41598-023-45929-z. PMID: 37963908
9. Nakase T., Tatewaki Y., Thyreau B., et al. Impact of constipation on progression of Alzheimer's disease: A retrospective study. CNS Neurosci Ther. 2022 Dec; 28(12): 1964-1973. https://doi.org/10.1111/cns.13940. Epub 2022 Aug 8. PMID: 35934956
10. Kim J.E., Roh Y.J., Choi Y.J., et al. Dysbiosis of fecal microbiota in Tg2576 mice for Alzheimer's disease during pathological constipation. Int J Mol Sci. 2022 Nov; 23(23): 14928. https://doi.org/10.3390/ijms232314928. PMID: 36499254
11. Yelleswarapu N.K., Masino M., Henderson S., et al. 5xFAD mice do not have myenteric amyloidosis, dysregulation of neuromuscular transmission or gastrointestinal dysmotility. Neurogastroenterol Motil. 2022 Dec; 34(12): e14439. https://doi.org/10.1111/nmo.14439. Epub 2022 Aug 5. PMID: 36458522
12. Fernandes R., Masino M., Flood E., et al. Studying the role of myenteric amyloidosis in gastrointestinal dysmotility and enteric neural dysfunction using APP/PS1 mice-is it an adequate animal model? Neurogastroenterol Motil. 2025 Sep; 37(9): e70056. https://doi.org/10.1111/nmo.70056. Epub 2025 May 2. PMID: 40317839
13. Van Ginneken C., Schäfer K.H., Van Dam D., et al. Morphological changes in the enteric nervous system of aging and APP23 transgenic mice. Brain Res. 2011 Mar; 1378: 43-53. https://doi.org/10.1016/j.brainres.2011.01.030. Epub 2011 Jan 15. PMID: 21241669
14. Kuzmin E.A., Pokidova K.S., Urazova K.M. PoKi. Version 0.0.1 [computer software]. Zenodo; 2026. https://doi.org/10.5281/zenodo.21708120
15. Kuzmin E.A., Pokidova K.S. CellSkeletDetector. Version 0.0.2 [computer software]. Zenodo; 2026. https://doi.org/10.5281/zenodo.21709108
16. Lalonde R., Kim H.D., Maxwell J.A., Fukuchi K. Exploratory activity and spatial learning in 12-month-old APP(695)SWE/ co+PS1/DeltaE9 mice with amyloid plaques. Neurosci Lett. 2005 Dec; 390(2): 87-92. https://doi.org/10.1016/j.neulet.2005.08.028. PMID: 16169151
17. Fu L., Sun Y., Guo Y., et al. Progressive spatial memory impairment, brain amyloid deposition and changes in serum amyloid levels as a function of age in APPswe/PS1dE9 mice. Curr Alzheimer Res. 2018; 15(11): 1053-1061. https://doi.org/10.2174/1567205015666180709112327. PMID: 29984654
18. Xue L.L., Huangfu L.R., Du R.L., et al. The age-specific pathological changes of β-amyloid plaques in the cortex and hippocampus of APP/PS1 transgenic AD mice. Neurol Res. 2022 Dec; 44(12): 1053-1065. https://doi.org/10.1080/01616412.2022.2112368. Epub 2022 Aug 18. PMID: 35981107
19. Na D., Zhang J., Beaulac H.J., et al. Increased central auditory gain in 5xFAD Alzheimer's disease mice as an early biomarker candidate for Alzheimer's disease diagnosis. Front Neurosci. 2023 May; 17: 1106570. https://doi.org/10.3389/fnins.2023.1106570. Erratum in: Front Neurosci. 2023 Jul 18; 17: 1250244. https://doi.org/10.3389/fnins.2023.1250244. PMID: 37304021
20. Ruan L., Kang Z., Pei G., Le Y. Amyloid deposition and inflammation in APPswe/PS1dE9 mouse model of Alzheimer's disease. Curr Alzheimer Res. 2009 Dec; 6(6): 531-540. https://doi.org/10.2174/156720509790147070. PMID: 19747158
21. Semar S., Klotz M., Letiembre M., et al. Changes of the enteric nervous system in amyloid-β protein precursor transgenic mice correlate with disease progression. J Alzheimers Dis. 2013; 36(1): 7-20. https://doi.org/10.3233/JAD-120511. PMID: 23531500
22. Manocha G.D., Floden A.M., Miller N.M., et al. Temporal progression of Alzheimer's disease in brains and intestines of transgenic mice. Neurobiol Aging. 2019 Sep; 81: 166-176. https://doi.org/10.1016/j.neurobiolaging.2019.05.025. Epub 2019 Jun 13. PMID: 31284126
23. Puig K.L., Lutz B.M., Urquhart S.A., et al. Overexpression of mutant amyloid-β protein precursor and presenilin 1 modulates enteric nervous system. J Alzheimers Dis. 2015; 44(4): 1263-1278. https://doi.org/10.3233/JAD-142259. PMID: 25408221
24. Liu G., Yu Q., Zhu H., et al. Amyloid-β mediates intestinal dysfunction and enteric neurons loss in Alzheimer's disease transgenic mouse. Cell Mol Life Sci. 2023 Nov; 80(12): 351. https://doi.org/10.1007/s00018-023-04948-9. PMID: 37930455
25. Rosenbaum C., Schick M.A., Wollborn J., et al. Activation of myenteric glia during acute inflammation in vitro and in vivo. PLoS One. 2016 Mar; 11(3): e0151335. https://doi.org/10.1371/journal.pone.0151335. PMID: 26964064
26. Чумасов Е.И., Майстренко Н.А., Ромащенко П.Н. и др. Патологические изменения глиальных клеток в энтеральной нервной системе толстой кишки при хроническом медленно-транзитном запоре. Сибирский научный медицинский журнал. 2023; 43(6): 191–202. https://doi.org/10.18699/SSMJ20230624. EDN: UJBNIO
Покидова Ксения Сергеевна, стажер-исследователь кафедры анатомии и гистологии человека
ул. Трубецкая, д. 8, стр. 2, г. Москва, 119048
Кузьмин Егор Александрович, ассистент кафедры анатомии и гистологии человека
ул. Трубецкая, д. 8, стр. 2, г. Москва, 119048
Яцковский Александр Никодимович, д-р мед. наук, профессор кафедры анатомии и гистологии человека
ул. Трубецкая, д. 8, стр. 2, г. Москва, 119048

|
1. Чек-лист ARRIVE | |
| Тема | ||
| Тип | Research Instrument | |
Скачать
(116KB)
|
Метаданные ▾ | |
Журнал «Сеченовский вестник» |
| Sechenov Medical Journal |
Рецензии на рукопись |
| Peer-review reports |
Название / Title | Морфологические изменения органов пищеварительного канала у животных с моделью болезни Альцгеймера/ Morphological changes of the digestive canal organs in animals with a model of Alzheimer's disease |
Раздел / Section
| КЛЕТОЧНАЯ БИОЛОГИЯ / CELL BIOLOGY
|
Тип / Article | Оригинальная статья / Original article |
Номер / Number | 1517
|
Страна/территория / Country/Territory of origin | Россия / Russia |
Язык / Language | Русский / Russian Английский / English
|
Источник / Manuscript source | Инициативная рукопись / Unsolicited manuscript |
Дата поступления / Received | 29.05.2026 |
Тип рецензирования / Type ofpeer-review | Двойное слепое / Double blind |
Язык рецензирования / Peer-review language | Русский / Russian
|
РЕЦЕНЗЕНТ А / REVIEWER A
Инициалы / Initials | 1517_А
|
Научная степень / Scientific degree | Доктор медицинских наук / Doctor of Sci. (Medicine) |
Страна/территория / Country/Territory | Пуэрто-Рико / Puerto Rico
|
Дата рецензирования / Date of peer-review | 16.08.2026 |
Число раундов рецензирования / Number of peer-review rounds | 2 |
Финальное решение / Final decision | принять к публикации / accept
|
ПЕРВЫЙ РАУНД РЕЦЕНЗИРОВАНИЯ / FIRST ROUND OF PEER-REVIEW
В представленной работе авторы исследуют изменения в органах желудочно-кишечного тракта у трансгенных мышей линии APPswe/PS1dE9, широко используемой в качестве модели болезни Альцгеймера. Работа посвящена актуальной проблеме изучения внецеребральных проявлений нейродегенеративного процесса и роли энтеральной нервной системы в патогенезе болезни Альцгеймера.
К достоинствам исследования следует отнести комплексный подход, включающий поведенческое тестирование животных, морфологические методы исследования, иммуногистохимический анализ нейрональных, глиальных и иммунных клеток. Авторами показано накопление β-амилоида в нейронах энтеральных сплетений желудка, тонкой и толстой кишки, выявлены признаки активации энтеральной глии и макрофагов, а также изменения экспрессии синаптофизина. Полученные результаты подтверждают вовлечение структур энтеральной нервной системы в патологический процесс при болезни Альцгеймера и согласуются с современными представлениями о существовании оси «кишечник–мозг».
Вместе с тем работа имеет ряд недостатков.
Прежде всего следует отметить небольшой объем выборки (по 5 животных в каждой группе), что ограничивает статистическую мощность исследования. Желательно привести обоснование размера выборки либо указать данное обстоятельство в качестве ограничения исследования.
Название статьи и формулировки выводов содержат указание на «морфофункциональные» изменения, однако представленные данные в основном характеризуют морфологическое состояние тканей. Прямые показатели функционального состояния желудочно-кишечного тракта (моторика, транзит кишечного содержимого, секреторная активность и др.) в работе не исследовались. В связи с этим рекомендуется скорректировать интерпретацию результатов либо дополнительно обосновать использование термина «морфофункциональные изменения».
Некоторые выводы носят несколько категоричный характер. В частности, утверждение о накоплении β-амилоида вследствие собственной экспрессии нейронами кишечных сплетений не полностью подтверждается представленными данными, поскольку иммуногистохимическое выявление Aβ не позволяет однозначно судить об источнике его образования. Аналогично увеличение иммунореактивности синаптофизина не обязательно свидетельствует об усилении синаптогенеза и может отражать другие процессы, связанные с нарушением внутриклеточного транспорта и нейрональным стрессом.
В обсуждении желательно более подробно сопоставить полученные результаты с ранее опубликованными работами, в которых уже были описаны амилоидные изменения и нейровоспалительные процессы в энтеральной нервной системе у мышей линии APP/PS1. Это позволит более четко обозначить научную новизну настоящего исследования.
Несмотря на отмеченные замечания, работа представляет интерес для специалистов в области нейробиологии, нейродегенеративных заболеваний и гастроэнтерологии. Полученные результаты расширяют представления о периферических проявлениях болезни Альцгеймера и роли энтеральной нервной системы в развитии патологического процесса.
ЗАКЛЮЧЕНИЕ: необходима доработка
ВТОРОЙ РАУНД РЕЦЕНЗИРОВАНИЯ / SECOND ROUND OF PEER-REVIEW
Авторы учли все замечания.
ЗАКЛЮЧЕНИЕ: принять к публикации
РЕЦЕНЗЕНТ B / REVIEWER B
Инициалы / Initials | 1517_В
|
Научная степень / Scientific degree | Доктор медицинских наук / Doctor of Sci. (Medicine)
|
Страна/территория / Country/Territory | США / USA
|
Дата рецензирования / Date of peer-review | 15.08.2026 |
Число раундов рецензирования / Number of peer-review rounds | 2 |
Финальное решение / Final decision | принять к публикации / accept
|
ПЕРВЫЙ РАУНД РЕЦЕНЗИРОВАНИЯ / FIRST ROUND OF PEER-REVIEW
В рукописи «Морфофункциональные изменения органов пищеварительного канала у животных с моделью болезни Альцгеймера» представлены результаты исследования морфологических и функциональных изменений в желудке и кишечнике трансгенных мышей линии APPswe/PS1dE9, используемых в качестве модели болезни Альцгеймера. При исследовании в головном мозге в экспериментальной группе были обнаружены амилоидные отложения. В сравнении с контрольной группой у животных линии APPswe/PS1dE9 во всех изученных органах желудочно–кишечного тракта (ЖКТ) было обнаружено депонирование Aβ в нейронах интрамуральных ганглиев также наблюдалось усиление реакции с антителами против синаптофизина в нейронах, активация GFAP+-глии и макрофагов. В межмышечном сплетении толстой кишки увеличилось количество S100В+-клеток. Таким образом было показано, что у животных линии APPswe/PS1dE9 морфофункциональное состояние структурных компонентов энтеральной нервной системы во многом подобны таковым в органах ЦНС.
Авторы провели тщательное исследование по весьма актуальной теме, экспериментальная парадигма не вызывает сомнений, выводы адекватны результатам. У меня нет возражений по сути, но хотелось бы прояснить некоторые детали.
СТРОКА 179: …подвергали эвтаназии путём наркотизации
Какое вещество, и как именно использовалось для эвтаназии? Есть ли ссылка на с источник?
СТРОКА 180: .. жидкостью Корнуа
Каков состав этой жидкости, чем обусловлен ее выбор? Есть ли ссылка на источник?
Слуховая кора мышей функционально неоднородна, и в моделях болезни Альцгеймера на мышах слуховая кора демонстрирует зональную уязвимость. Различные зоны обрабатывают разные аспекты звука, патология болезни Альцгеймера приводит к деградации зон обработки высоких частот, кодирования пауз и временной обработки раньше, чем зон обработки низких частот. Если у авторов есть данные, или предварительные соображения относительно проявлений зональной уязвимости слуховой коры при развитии болезни Альцгеймера, было бы очень важно поместить их в рукопись. Если таких данных нет, я посоветовал бы просто уточнить, какие именно зоны слуховой коры исследовались.
Рукопись хорошо структурирована, иллюстрации соответствуют тексту, цитируемые источники адекватны. Я буду рад рекомендовать рукопись к публикации после незначительных уточнений, перечисленных выше.
ЗАКЛЮЧЕНИЕ: необходима доработка.
ВТОРОЙ РАУНД РЕЦЕНЗИРОВАНИЯ / SECOND ROUND OF PEER-REVIEW
Авторы учли все замечания.
ЗАКЛЮЧЕНИЕ: принять к публикации
РЕКОМЕНДАЦИИ НАУЧНЫХ РЕДАКТОРОВ ЖУРНАЛА / RECOMMENDATIONS OF THE SCIENTIFIC EDITORS OF THE JOURNAL
ПЕРВЫЙ РАУНД РЕЦЕНЗИРОВАНИЯ / FIRST ROUND OF PEER-REVIEW
Ключевые замечания:
Незначительные замечания:
ВТОРОЙ РАУНД РЕЦЕНЗИРОВАНИЯ / SECOND ROUND OF PEER-REVIEW
По итогам повторного рассмотрения рукописи просим учесть следующие замечания:
 Послать статью по эл. почте (Необходимо имя пользователя (логин))
Связаться с автором (Необходимо имя пользователя (логин))
119048, г. Москва, ул. Трубецкая, д. 8, стр. 2
E-mail: sechenovmedj@staff.sechenov.ru